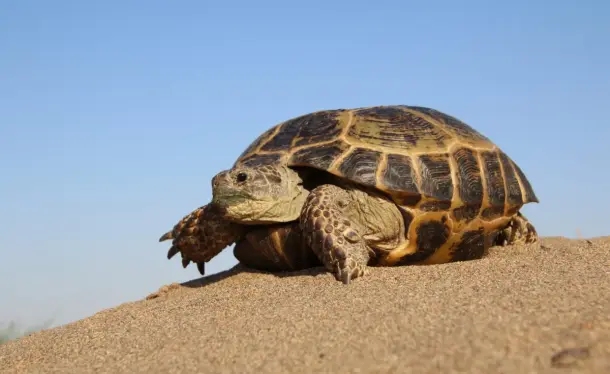
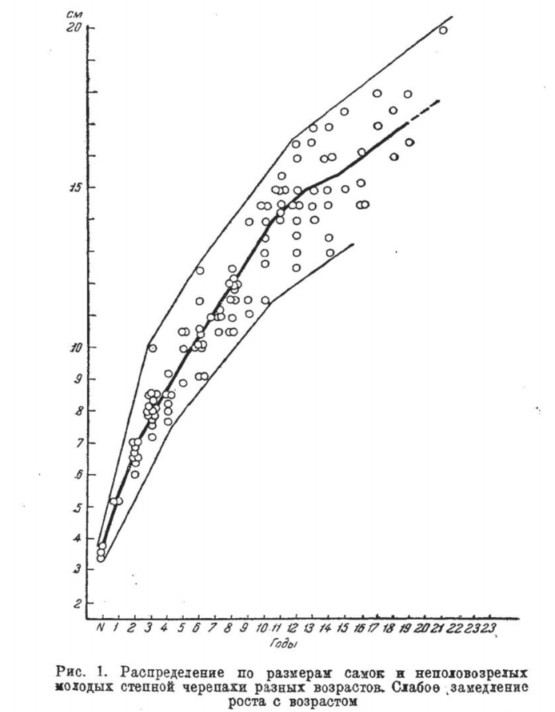
Так, наиболее характерный внешний признак, различающий самцов от самок, — длинный хвост с анусом у его корня у самцов и анальное отверстие почти на самом конце короткого хвостового выступа у самок— начинает проявляться уже с шестого и отчетливо определяется на восьмом году.
Соотношение полов у степной черепахи я мог учесть лишь весьма приблизительно, так как удалось проделать лишь небольшое количество учетов во время массового спаривания: в последних числах апреля и первых числах мая (в 1937 г. спаривание запоздало в связи с холодной весной); учеты показали, что отношение количества самцов к количеству самок близко к единице.
Количество откладываемых яиц и место откладки
Количество откладываемых одной самкой яиц было учтено по вскрытиям самок. В каждой вскрытой самке учитывались не только яйца, лежащие в яйцеводах, но также и количество зрелых фолликулов.
Последние развиваются, видимо, во время спячки; весной, к началу периода спаривания, они уже вполне развиты. До начала откладки яиц количество зрелых фолликулов у одной самки очень велико — в среднем из 20 вскрытий крупных самок оно равно 12—16 шт. (самое большее 22 шт.). У мелких 10—12-летних самок фолликулов развивается меньше — 9—12 (по 10 вскрытиям). С началом откладки яиц количество фолликулов быстро уменьшается. Так, у десяти крупных самок, вскрытых 12—15 мая 1937 г. было найдено в среднем 8—10 фолликулов и у шести особей, кроме того, по 2—3 яйца в яйцеводах. Из 10 самок, вскрытых 25—30 мая, оказалось: у трех по 2, у одной 3 яйца в яйцеводах при отсутствии зрелых фолликулов и у одной самки 2 зрелых фолликула и 1 яйцо в яйцеводах. К 10 июня у самок уже не наблюдалось ни яиц, ни зрелых фолликулов.
Некоторые моменты овогенеза и строение отложенного яйца
После окончания кладки яиц в яичнике половозрелой самки черепахи не остается зрелых фолликулов. Однако яичник такой самки содержит довольно много (от 15 до 35) мелких, диаметром 4—5 мм, беловатых овоцитов, ясно выделяющихся размерами и цветом, от других более мелких клеток яичника.
Видимо, именно они, увеличиваясь за время спячки, дают ко времени спаривания крупные «желтки», сидящие в зрелых фолликулах. Каждый вполне зрелый овоцит («желток») представляет собой шар диаметром около 18—22 мм, весом около 8,5 г и объемом около 10 см ярко-желтого цвета.
Как говорилось выше, одновременно овулируют только 2—3 зрелых фолликула. Обычно яйцеклетки можно найти в обоих яйцеводах — около 85% случаев (из оставшихся 15% в десяти было вообще только одно яйцо). Яйцеклетки каждой партии входят в яйцеводы, видимо, одновременно, так как оба яйцевода почти всегда содержат яйца на одинаковой стадии развития оболочек; кроме того, и яйца одной кладки (а также яйца, искусственно извлеченные из обоих яйцеводов) имеют чаще всего одну и ту же стадию развития зародыша.
Яйцеводы степной черепахи, как и других черепах, делятся на следующие отделы: воронка, белковый отдел, отдел Uterus и Vagina [Гирсберг (Griersberg, 1922)]. Яйцо в отделе воронки не претерпевает изменений, которые начинаются лишь на границе следующего отдела и сводятся к следующему: яйцеклетка увеличивается в размерах с 18—22 до 28 мм в диаметре, причем увеличение идет, видимо, за счет восприятия желтком воды, так как желток становится гораздо более жидким, чем в яичнике. Здесь яйцеклетка приобретает размеры, свойственные желтку вполне сформированного яйца.
В белковом отделе яйцевода вокруг яйцеклетки образуется белковая оболочка. Она состоит из небольшого количества очень плотного прозрачного белка и покрывает яйцо неравномерно, а концентрируясь на полюсах, что намечает будущую вытянутую форму яйца, почти весь остальной белок диффундирует в яйцо уже сквозь первые слои волокнистой оболочки, которая образуется в следующем отделе яйцевода вместе с известковой оболочкой.
Размеры яиц степной черепахи варьируют в очень широких пределах, как видно из приводимого вариационного ряда длины яиц, где наиболее крупные варианты (57 мм) почти в полтора раза превышают по длине самые мелкие (44 мм).
|
Длина, мм |
44 |
45 |
46 |
47 |
48 |
49 |
50 |
51 |
52 |
53 |
54 |
55 |
56 |
57 |
|
|
Число яиц |
1 |
1 |
7 |
4 |
3 |
10 |
3 |
3 |
3 |
1 |
3 |
— |
1 |
1 |
Всего 41 |
Не менее сильно варьируют яйца и по ширине, что указывает на очень малое постоянство формы. В среднем длина яйца равна 49,25 мм при δ±2,98 и ширина 33,95 при δ±1,91.
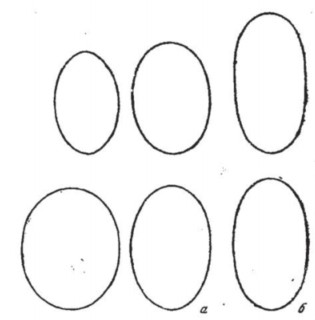
Рис. 2 изображает форму нескольких яиц черепахи (наиболее характерные отмечены а и б). Яйцо степной черепахи в общем всегда имеет гомополюсную (равнозаостренную) форму, характерную для яиц почти всех рептилий.
Вес целого яйца колеблется, как показывает приводимый вариационный ряд, в довольно широких пределах (мин. 23, макс. 36 г).
|
Вес, г |
22 |
23 |
24 |
25 |
26 |
27 |
28 |
29 |
30 |
31 |
32 |
33 |
34 |
35 |
36 |
37 |
38 |
|
Число |
0 |
2 |
3 |
2 |
4 |
5 |
9 |
12 |
8 |
8 |
9 |
4 |
1 |
0 |
2 |
0 |
0 |
Средний вес яйца равен 29,3 г± 2,80. Объем целого яйца составляет около 28 см³.
Что касается соотношения отдельных частей яйца, то о нем дает представление табл. 1, где для сравнения приводится таковое яйца морской черепахи — Thalassochelys cortica (Tomita по Needham, 1. с.).
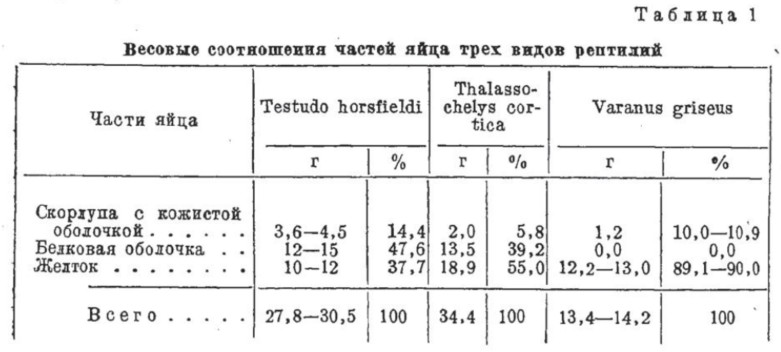
Очевидная разница между обоими видами сводится к значительно большему относительному весу скорлупы (Волокнистая оболочка составляет около 10%, скорлупа около 90% от их общего веса) и белка у Testudo и очень большому относительному весу желтка у Thalassochelys.
Эти признаки сближают последнюю с чешуйчатыми (Squamata), у которых яйцо состоит только из легкой скорлупы и огромного желтка. Примером может служить соотношение частей в яйце варана (табл. 1).
Большой удельный вес белка в яйце степной черепахи связан с экологическими условиями развития яйца. Яйца чешуйчатых воспринимают извне до 80% нужной для развития воды, яйца морских черепах до 40% (остальная вода воспринимается из белка). Яйца степной черепахи развиваются в условиях большой сухости и возможность восприятия воды из окружающей среды для них весьма ограничена. В связи с этим у степной черепахи значительно увеличилось количество белка, который полностью обеспечивает водой развивающийся зародыш (подобно птицам).
С другой стороны, соотношение частей у Testudo походит на таковое яиц птиц, характеризующихся как раз значительным (около 10%) относительным весом скорлупы и большим количеством белка [Нидгем (Needham, 1931) и др.].
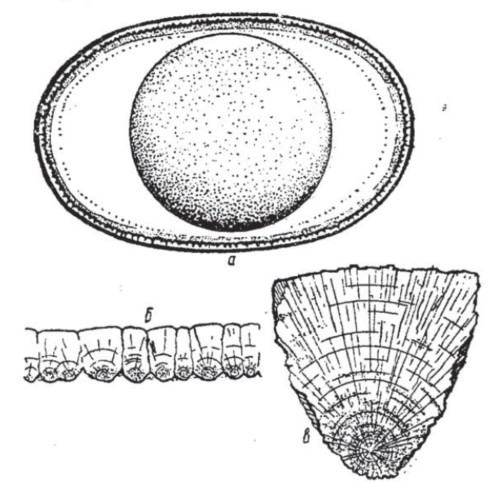
Строение свежеотложенного яйца черепахи показано на рис. 3, а. На нем видно, что центр яйца занимает желток, настолько крупный, что почти касается волокнистой оболочки в области экватора яйца (явление, отмечавшееся многими при описании яиц рептилий, содержащих белок) (Clark, 1891, Voeltzkow, 1899 и др.). Белок студенистый и плотный, лежит, главным образом, по острым концам яйца и образует у экватора лишь очень тонкую прослойку. Халаз нет и каких-либо структур в белке [вроде, например, рядов прозрачных зерен Агасситц и Кларк (Agassitz & Clark, 1857)] не обнаружено. Белок разделяется на нерезко ограниченные слои, из которых лучше отличимы: 1) очень жидкий тонкий слой, лежащий непосредственно вокруг желтка и обеспечивающий последнему возможность вращения, 2) следующий довольно толстый слой очень плотного белка; 3) несколько слоев белка средней плотности, 4) тонкий поверхностный слой жидкого белка.
Волокнистая оболочка не делится, как у птиц, на два независимых слоя (внутреннюю и внешнюю волокнистые оболочки), а представляет собой единое образование.
Воздушного пространства, как правило, нет: воздух, появляющийся иногда при пересушивании яиц под скорлупой, почти всегда лежит между волокнистой оболочкой и белком [Ратке (Rathke, 1848)].
В верхних слоях волокнистой оболочки залегают основания отдельностей, слагающих последнюю оболочку — известковую (Сергеев, 1937). Она состоит из низких призм, образующих подобие торцовой мостовой (рис. 3, б). Каждая призма имеет сферокристаллическое строение (рис. 3, в), причем центр сферокристалла лежит в самом верхнем слое волокон. Поры очень редки и имеют вид простых просветов между отдельностями. Чего-либо подобного кутикуле птичьего яйца нет.
В общем яйцо степной черепахи "построено по типу, весьма характерному для рептилий, имеющих яйца с известковой скорлупой и белковой оболочкой, в частности по типу, характерному для черепах (Агасситц). По форме, отношению белка и желтка и т. д. оно» близко в общем и к яйцам крокодилов.
О функциях яйцевых оболочек
а) Защитные функции. Способность яиц развиваться В условиях очень большой сухости побудила меня поставить несколько несложных опытов по выяснению роли различных оболочек яйца в защите его от высыхания.
Первая серия опытов была поставлена с целью уяснить роль белковой оболочки. A priori можно было думать, что белковая оболочка в силу гигроскопичности белка может не только служить резервуаром воды, но, препятствуя испарению в силу гигроскопичности, и защищать яйцеклетку от высыхания.
Методика опыта была такова: у начавшего развиваться (стадия гаструлы) яйца степной черепахи проделывалось отверстие в известковой и волокнистой оболочках величиной в 1 см2. Затем такое яйцо вместе с контрольным (целым) выставлялось на открытый воздух в тени; температура воздуха около 30° при низкой относительной влажности; иногда для сравнения рядом помещалась еще пустая скорлупа, налитая водой.
Результаты всех опытов (более десяти) были весьма отчетливы: яйца с проделанным в наружных оболочках отверстием высыхали наполовину своего объема в-1—2 суток, в то время как контрольные почти не теряли в весе.
Вначале белок высыхал лишь немного медленнее воды, но далее высыхание его сильно замедлялось; однако в таких полувысохших яйцах развитие никогда не продолжалось.
Вторая группа опытов сводилась к выяснению значения в сухо- устойчивости яиц волокнистой оболочки. Для этой цели были использованы вынутые из яйцеводов яйца, вполне сформированные, одетые уже белковой и волокнистой оболочками, но еще лишенные известкового покрова. Эти яйца выставлялись вместе с вполне сформированными, т. е. одетыми и известковой оболочкой, на открытый воздух в те же условия, что и в предыдущих опытах.
Все опыты дали одинаковый результат: яйца, еще не покрытые известковой оболочкой, очень быстро высыхали и сморщивались, тогда как контроль оставался нормальным. Такой же результат, хотя и не так быстро, получился, когда мягкие и вполне сформированные яйца были закопаны в сухой песок на глубине в 15—20 см.
Кроме опытов с мягкими, лишенными известковой оболочки яйцами, я проделал эксперименты и с яйцами, вполне сформированными. В этом случае удалялся небольшой участок известковой скорлупы, и яйцо оставалось с контролем (целым яйцом) на открытом воздухе. Высыхание также наступало, но менее быстро. В некоторых опытах яйца с удаленным участком скорлупы закапывались в песок. Тогда высыхание наступало так медленно, что через 15—18 дней после операции развитие зародыша еще продолжалось, хотя белковая оболочка и желток под местом удаления скорлупы как бы присыхали к волокнистой оболочке, образуя плотную пробку.
На основании изложенных опытов роль различных оболочек яйца можно представить себе следующим образом.
Белковая оболочка, содержащая, по моим данным, около 95% воды, является только водным резервуаром, но существенной роли в защите яйцеклетки от высыхания не играет (кроме того, она быстро воспринимается желтком). Волокнистая оболочка, хотя и сильно замедляет испарение, не в состоянии одна защитить яйцеклетку от высыхания. Последнее осуществляется известковой оболочкой.
б) О трофической функции известковой яйцевой оболочки. Изменения, происходящие в скорлупе яиц птиц за время насиживания, описаны давно, и теперь является доказанным, что известковая оболочка яйца является своего рода запасом минеральных солей, который и используется развивающимся эмбрионом. У рептилий это явление не было описано, если не считать беглого замечания Дераниагала (Deraniyagala, 1936) о таком процессе в яйцах крокодила. Вместе с тем скорлупа развивающегося яйца черепахи испытывает весьма характерные изменения, сходные о наблюдающимися у птиц. К концу развития зародыша известковая оболочка яйца степной черепахи, ранее очень плотно связанная с нижележащей волокнистой, начинает как бы отставать от последней и при попытке отделить небольшой участок легко отпадает большими кусками. Что это не простое следствие подсыхания, видно из следующего: скорлупа неразвившегося яйца, даже и подсушенная, всегда сохраняет прочную связь с волокнистой оболочкой.
Для выяснения структурных изменений, происходящих в скорлупе, мной были изготовлены серии шлифов скорлупы, взятой с яиц на разных стадиях развития зародыша. Из сравнения шлифов скорлупы ранних стадий с таковыми стадий, предшествующих вылуплению, очевидно, что изменение свойств скорлупы зависит от разрушения нижних частей отдельностей, ее слагающих. Обращенные к волокнистой оболочке концы отдельности представляются изъеденными и потрескавшимися настолько, что характерное сферокристал-лическое строение совершенно теряется. Разрушения отдельностей начинаются с 60—70 дней развития.
Изложенное делает очевидным факт использования зародышем извести из известковой оболочки. Ослабление в связи с этим прочности скорлупы, вероятно, облегчает вылупление.
О развитии зародыша
Первые стадии дробления яйцо проходит, еще находясь в яйцеводе. Свежеотложенные яйца содержат обычно зародышей на разных стадиях гаструляции. Более поздних стадий я не находил ни разу.
Дальнейшее развитие зародыша проходит в общем весьма медленно! Яйца, бывшие в моем распоряжении, содержались в террариуме при температуре около 30° (26—32°) под 10-сантиметровым слоем песка, они потребовали на развитие от момента откладки до вылупления 103—106 дней, хотя вариация в сроке, вероятно, была бы больше, если бы я довел до вылупления большее число яиц.
Данных о том, как долго длится развитие в природе, у меня не имеется, несомненно, однако, что черепашки вылупляются из яиц в то же лето, когда эти яйца отложены.
Эмбриональная смертность при выведении яиц в инкубаторе достигает 30—35%. Эмбриональная смертность в естественных условиях количественно мной учтена не была. О ее существовании говорят многочисленные обнажения погибших кладок черепахи при раздувании ветром неподвижных до того времени песков. Состояние скорлупы, обычно лишь слегка потрескавшейся, и расположение яиц указывают, что все такие кладки гибнут не от хищников, а от каких-либо климатических или внутренних причин.
Из хищников скорлупа яйца черепахи была мной неоднократно находима в желудках варана (Varanus griseus) и в его отрыжке. По следам было несколько раз установлено поедание яиц черепахи лисицей.
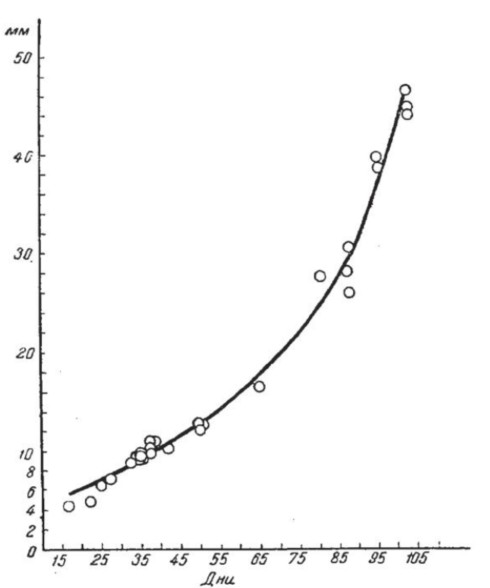
а) Рост зародышей. Ввиду необходимости использования зародышей и зародышевых оболочек для специальных эмбриологических целей, измерения веса зародышей мной не производились. Я ограничился несколькими линейными промерами, сводка которых дана в табл. 2.
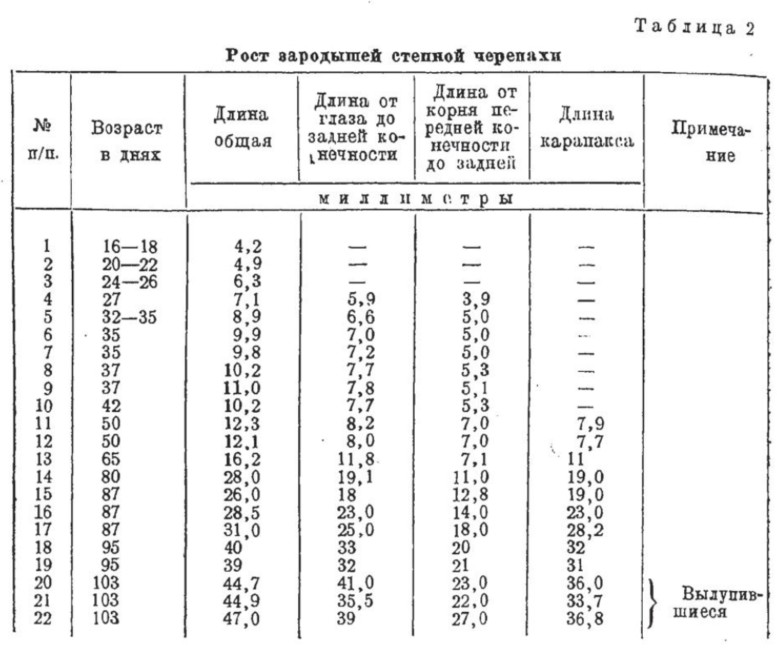
Общая длина бралась штангенциркулем между наиболее удаленными точками головы и хвоста. Расстояние от центра глаза до задней части основания задней конечности не требует пояснений. Расстояние между конечностями бралось от переднего края основания передней конечности до заднего края основания задней. Длина карапакса измерялась от переднего края nuchale до заднего края supracaudale. Возраст зародышей определен приблизительно, и ошибки в 2—3 дня возможны.
При взгляде на рис. 4, изображающий изменение длины зародыша, очевидно, что рост зародыша степной черепахи идет с изменяющейся скоростью, и приросты, незначительные вначале, к концу периода развития становятся очень большими.
Любопытно, что, как мы дальше увидим, сравнительно медленным ростом характеризуется период органогенеза, период, когда зародыш превращается из индифферентного зародыша рептилии в зародыш черепахи. Когда зародыш уже более или менее сформирован и имеет хорошо выраженный спинной и брюшной щиты и другие типичные признаки черепах, наступает период его интенсивного роста, не сопровождающийся существенными морфологическими изменениями.
Рост зародыша степной черепахи имеет явное сходство с ростом зародышей немногих других изученных в этом отношении рептилий [Дераниагала, 1936; Гофф и Гофф (Goff and Goff, 1935), Бор из Нидгем (Bohr из Needham, 1. с.) и др.]. В свою очередь эти данные указывают на сходство эмбрионального роста рептилий с эмбриональным ростом птиц. Последнее интересно, так как постэмбриональный рост рептилий от постэмбрионального роста птиц отличается очень резко (Сергеев, 1937, 1939).
б) Развитие внешней формы зародышей. Ввиду полной неизученности эмбриологии степной черепахи ниже приводятся рисунки и краткие описания зародышей, причем выбраны лишь немногие, наиболее типичные стадии развития.
Существенной особенностью развития является быстрое увеличение размеров желтка, заполняющего к 34—40 дням всю скорлупу. Оно происходит за счет восприятия белка, причем верхняя половина желтка наполняется полупрозрачной жидкостью, а желточные зерна образуют осадок, занимающий нижнее полушарие желтка (по высоте от 1/3 до 1/3 диаметра желтка).
Общим признаком всех зародышей черепахи на ранних стадиях развития является также их положение относительно желтка: все зародыши лежат под поверхностью желтка, причем головной отдел погружен в желток наиболее глубоко.
Рис. 5 изображает зародыша Testudo horsfieldi в возрасте 20—22 дней. Зародыш лежит в углублении желтка и целиком одет амнионом, образующим короткий «амниотический ход». Экстраэмбриональный целом образует небольшие пузыревидные вздутия по бокам головного конца зародыша. По краям широкого зародышевого диска кровеносные сосуды начинают сливаться в sinus terminalis. Имеются две желточные вены.
Сам зародыш имеет закрывшуюся нервную борозду с развитыми мозговыми пузырями и хорошо выраженными глазными. Голова несколько пригнута вниз, и имеется мезенцефалический изгиб. Слуховая ямка открыта. Жаберные щели в числе четырех хорошо видны. Сердце лежит под жаберной областью в виде прозрачного пузыря. Кишечник открыт, но границы стенок тела отчетливы. По спланхноплевре зародыша проходят многочисленные отходящие от спинной аорты сосуды, продолжающиеся по стейке желточного мешка. Хвостовая часть зародыша едва начала обособляться.
Зародыш, показанный на рис. 6, имеет возраст 27 дней. Развитие его продвинулось значительно вперед. Голова подогнута вниз. Глаза, хотя и небольшие, имеют ясно видимый хрусталик. Хорошо виден высокий выступ среднего мозга. Крыша 4-го желудочка прозрачна. Сердце очень велико. Имеются закладки обеих пар конечностей, представленные недифференцированными выступами, имеющими треугольно полукруглую форму в плане, и основание в поперечном сечении линзообразное. Закладка передней конечности лишь слегка больше закладки задней. Брюшная полость открыта на большом протяжении. Отхождение желточных артерий сходно с предыдущим зародышем. Желточная вена одна, проходит по голове зародыша снизу, доходя до sinns terminalis, вполне сформировавшегося на этой стадии. Задняя часть тела зародыша отграничена от внезародышевой части листков, утолщена и погружена в желток. Видимых зачатков хвоста и аллантоиса не имеется.
У зародышей на этой стадии бросаются в глаза относительно очень маленькие размеры головы по сравнению с телом. Сходную картину мы видим и у других черепах, например. Chelydra (Агасситц), и у крокодилов (см., например, известные рисунки Фельтцкова, 1. с.). С другой стороны, у зародыша Sqaamata на сходной стадии развития голова пропорционально очень велика, в особенности у ящериц. У змей эта особенность не так бросается в глаза благодаря значительно большей длине тела. Наибольшую относительную вели-чину имеет голова у зародышей птиц.
Такая же относительно малая величина головы сохраняется и у зародыша на следующей стадии, изображенного на рис. 7 (возраст зародыша 32—35 дней). Головной отдел зародыша испытал значительные изменения главным образом благодаря удлинению верхнечелюстной закладки и сближению обонятельных ямок; глаза по-прежнему невелики; выступы среднего мозга гораздо менее заметны; пер-вая жаберная щель закрыта снизу. Брюшная полость спереди закрыта до уровня заднего края передних конечностей, сзади — до уровня задних.
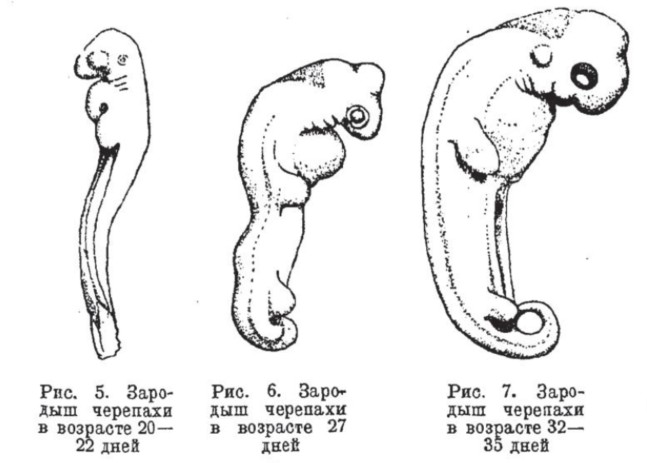
Конечности значительно выросли в длину; намечается выделение расширенного кистевого отдела. Передняя конечность заметно крупнее задней и более развита; задний отдел вполне обособился и снабжен длинным свернутым в полукольцо хвостом. Аллантоис имеет вид небольшого плоского бугорка.
Следующая стадия (возраст около 35 дней) в общем очень сходна с описанной и разнится несколько большим развитием головы, где сильно сгладились бугры мозговых пузырей, и хвоста, значительно удлинившегося. Аллантоис представлен круглым небольшим пузырем с почти неразвитой сетью кровеносных сосудов. Зародыш на этой стадии начинает поворачиваться на бок.
Зародыш в возрасте 37—42 дней имеет глаза более крупные и ясно пигментированные; обонятельные ямки сближены и лежат на конце морды; жаберные щели закрылись и начинает формироваться шея. Брюшная полость закрыта на значительном протяжении, и вхождение желточных сосудов скон-центрировано в небольшом отверстии.
Передняя конечность уже явно делится на отделы; в складке, идущей по краю, еще нельзя различить отдельных пальцев. Задняя развита несколько меньше. Аллантоис достиг величины амниотического пузыря, и на части, прилегающей к серозе, развита густая сеть капилляров. Площадь, занимаемая сосудами аллантоиса, по сравнению с желточными, очень мала (около 1/12). Сделанные выше замечания относительно маленьких размеров головы у зародышей черепах для этой стадии сохраняют свою силу.
Не говоря о птицах, где огромные глаза, полушария переднего мозга и мозжечок делают огромной голову зародыша на сходной стадии, даже у ящерицы голова явственно больше, чему зародыша Testudo horsfieldi.
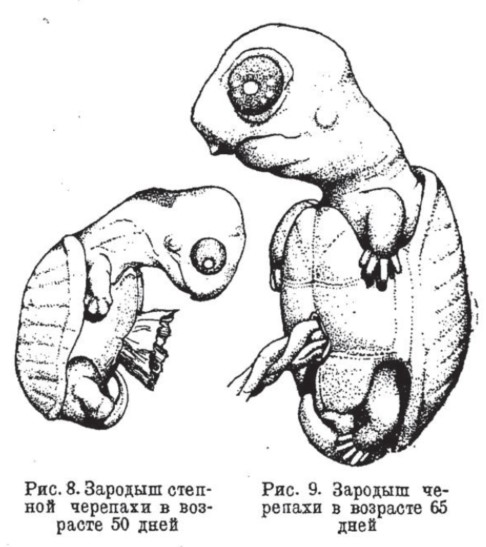
Рис. 8 изображает зародыш черепахи в возрасте 50 дней. На этой стадии уже сформировываются основные признаки, определяющие черепах. Голова имеет значительные размеры; хорошо развиты глаза. Уже вполне сформирована нижняя челюсть и разрез рта, принявший нормальное для черепах положение; ороназальные борозды замкнулись. На конце морды намечаются первые видимые следы непарного яйцевого бугорка. Зародыш имеет уже явно выраженную довольно длинную шею. На спинной стороне круговая складка (валик) обозначает границу образующегося карапакса; внутри складки просвечивают еще нерасширенные ребра и хорошо заметен ряд утолщений над позвонками. Хорошо виден передний край пластрона, в котором пока еще незаметно никаких границ окостенений. Конечности значительно продвинулись вперед в своем развитии; в передней помимо деления на отделы, обозначилась дифференцировка кисти, где явно различимы закладки четырех пальцев, связанные, правда, общей складкой. В задней конечности закладки пальцев менее ясны. Хвост, подвернутый на брюшную сторону, довольно длинен. Пупочное отверстие имеет ромбическую форму и занимает по длине большую часть пластрона. Аллантоис на этой стадии сильно развит и занимает значительную часть поверхности анимальной половины яйца.
У зародыша в возрасте 65 дней развитие продвинулось далеко вперед (рис. 9). Голова очень велика, так же как и глаза, на которых заметны закладки склеротических косточек. Конец морды начинает принимать прямооб- рубленную форму, характерную для Testudo; яйцевой бугорок хорошо развит. Шея длинная. Границы спинного и брюшного щитов вполне определились, карапакс нависает над шеей; также резки границы щита вокруг конечностей. На пластроне намечаются границы роговых щитков. Пупочное отверстие занимает то же положение, что и у готовой к вы-луплению черепашки. Конечности имеют хорошо выраженные длинные цилиндрические когти. Хвост относительно более короткий, чем на предыдущих стадиях. Зародыш на этой стадии получает все основные черты строения черепах, и с этой стадии начинается чрезвычайно интенсивный рост зародыша, сопровождающийся лишь очень слабой (сравнительно с предшествующими стадиями) дальнейшей дифференцировкой.
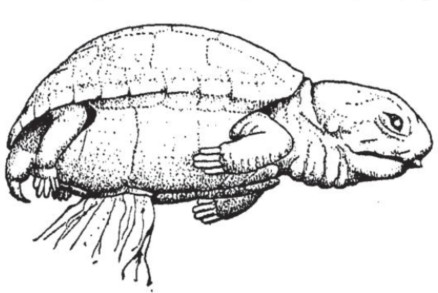
На рис. 10 дан эмбрион в возрасте около 80 дней. Голова его вполне сформирована, хотя роговых щитков здесь еще не образуется. Зато спинной и брюшной щиты покрыты вполне отчетливыми, слегка пигментированными роговыми щитками. Роговыми же бугорками покрыты и лапы, несущие длинные когти. Положение лап тождественно с взрослой черепахой. Хвостовой вырост очень мал, а собственно хвост (т/е. отрезок от anus’a до кончика) совсем незначителен.
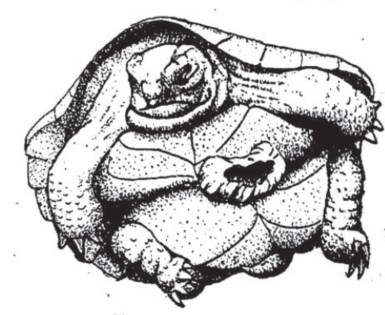
Дальнейшая дифференцировка настолько слаба, что мы можем с этой стадии перейти прямо к зародышу, готовому к вылуплению (рис. 11). До начала втягивания желтка он располагается в яйце таким образом, сохраняющий значительные размеры желточный мешок. Голова втянута, конечности прижаты к телу. Сходное положение зародыша черепах перед вылуплением имеется и у других черепах (Булдовский, 1935 и др.).
Процесс втягивания зародышевых оболочек и желтка начинается с прорыва их в области головы и идет в основном сходно с тем, что описано Гохштеттером (Hochstetter) для Emys. Желток окончательно втягивается, пупок закрывается через день после вылупления.
У более старых черепах на месте, где лежал желточный мешок, иногда заметно темное пятнышко.
б) Изменение формы панциря черепах. Возрастные изменения формы панциря описывались очень давно. Уже Агасситц (1. с.) пробовал дать эколо-гическое объяснение округлой и плоской форме панциря сеголеток Emydinae. Однако для наших видов, и властности для степной черепахи, таких данных не имеется, хотя изменения формы панциря с возрастом имеют место.
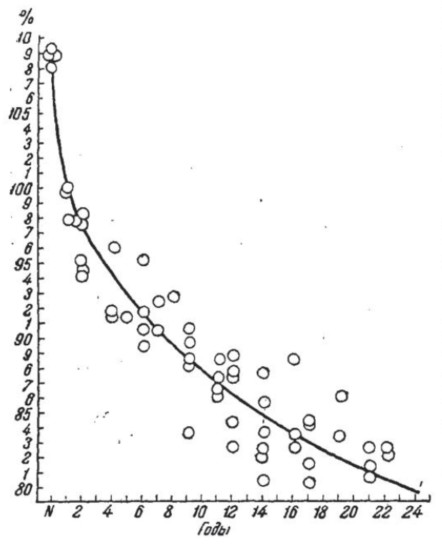
Рис. 12 показывает изменение отношения ширины карапакса к его длине (в %) у черепах разного возраста (самки и молодые). Отчетливое падение кривой, т. е. все большее относительное удлинение панциря, продолжается, по-видимому, очень долго, во всяком случае до 18—20-летнего возраста. У самцов падение отношения, по-видимому, приостанавливается к 9-11 годами далее (до возраста 11-20 лет) оно колеблется между 92 и 84%, при средней около 87%. Самцы, таким образом, имеют несколько более округлый панцирь, чем самки одинакового с ними возраста.
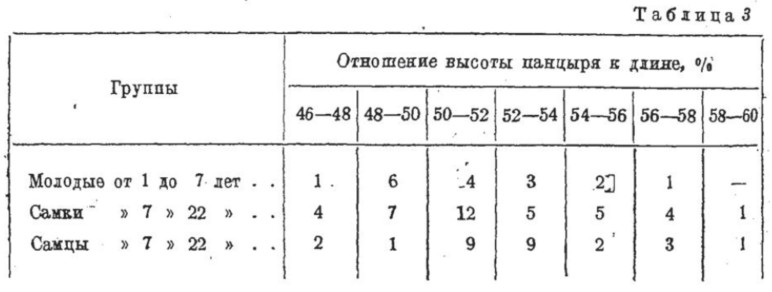
Высота панциря не показывает изменения с возрастом (графики, построенные по принципу рис. 12, не приводятся) и как у молодых, так и у половозрелых самок и самцов колеблется, примерно, в одинаковых пределах.
В заключение следует отметить, что резкие возрастные изменения претерпевают швы между роговыми щитками панциря. Они становятся из прямых сложно извитыми. По-видимому, начало изменения швов относится к моменту замедления роста (к 14—16 годам у самок) и наиболее резко выражено на медиальном шве пластрона.
Выводы
- Половая зрелость достигается степной черепахой к десяти годам, вторичные половые признаки проявляются значительно раньше.
- Самка степной черепахи откладывает яйца не один раз в год, а несколькими кладками. Кладка в среднем содержит 3—4 яйца, общее количество откладываемых яиц равно 12—16 в год.
- Яйца, откладываются в песок и развиваются при температуре около 25—30°, мало колеблющейся благодаря значительной глубине, на которую они откладываются.
- Образование третичных оболочек яйца сходно с описанным для птиц.
- Вполне сформированное яйцо имеет следующие средние размеры: 49,2 мм длины, 33,95 мм ширины и вес 29,3 г.
- По строению оболочек и отношению частей яйцо степной черепахи сходно с яйцами других черепах и крокодилов.
- Функцию защиты яйца от высыхания несут волокнистая и, главным образом, известковая оболочки. Последняя имеет также значение резерва минеральных солей, используемого зародышем.
- Развитие степной черепахи (от откладки яйца — зародыш на стадии гаструлы — до вылупления) продолжается при температуре около 30° немного более трех месяцев.
- Рост (линейный) зародыша степной черепахи резко ускоряется к концу зародышевого развития, что стоит в связи с окончанием важнейших процессов органогенеза уже на средних стадиях развития.