Черепахи - уникальная группа позвоночных животных. Они имеют короткий беззубый череп анапсидного типа. Их туловище заключено в панцирь - консолидированную и иммобилизированную структуру, сложенную разнообразными костными пластинками. Для черепах характерно необычное размещение поясов конечностей: так, лопатки черепах лежат под ребрами, а не над ребрами, как у других четвероногих. В отличие от большинства высших позвоночных, у черепах нет грудины, и отсутствуют вентральные части ребер. Следовательно, у них не сформирована замкнутая грудная клетка - важнейший признак амниот.
Необычные конструктивные особенности черепах издавна привлекали внимание исследователей. Однако морфологический разрыв между черепахами и типичными тетраподами затруднил решение вопроса об их происхождении. В результате в качестве ближайших предков черепах (или родственников) стали рассматриваться самые различные группы древних амниот. Уже на рубеже XIX-XX вв. существовало несколько альтернативных филогенетических предположений. Дальнейшее накопление и уточнение палеонтологических данных лишь расширило спектр вероятных предков черепах.
Выдвинутые филогенетические гипотезы можно сгруппировать в несколько категорий, отличающихся методологическими подходами и отражающих логику исторического развития филогенетики.
1. Гипотезы внешнего сходства. Это наиболее ранние предположения относительно происхождения черепах. Так, сходство посткраниального скелета черепах и завроптеригий (плезиозавров и плакодонтов) позволило предполагать, что между ними существует близкое родство. В отношении плезиозавров эта идея была высказана Бауром [3], мнение о связи черепах и плакодонтов нашло отражение в ранних работах Иекеля [12].
2. Сравнительно-морфологические гипотезы. Разработанная в конце ХЕХ в. теория височных окон позволила выделить рептилий с полной крышей черепа в особый подкласс Anapsida, включающий черепах. Таким образом, была заложена основа идеи об их происхождении от древних анапсид - котилозавров. С этого времени предметом оживленных дискуссий становится вопрос о том, какие именно анапсидные рептилии дали начало черепахам. В качестве таких предковых или близкородственных таксонов по мере накопления данных стали рассматриваться диадекты [5], парейазавры [11], проколофоны [2] или капториноморфы [8].
Особая точка зрения на происхождение черепах была инициирована описанием эвнотозавра (Eunotosaurus) - небольшой рептилии из верхнепермских отложений Южной Африки. Эта форма обладала яркими чертами сходства с черепахами в строении посткраниального скелета, что позволило считать ее непосредственным предком или, по крайней мере, ближайшим родственником черепах [21]. Однако в ходе переизучения остатков мнение о тесных связях эвнотозавра с черепахами было отвергнуто [17].
3. Кладистические гипотезы. В современных филогенетических исследованиях, основанных на кпадистическом анализе палеонтологических данных, взаимоотношения черепах с другими группами рептилий по-прежнему не находят однозначной оценки. Так, согласно мнению одних авторов [9], черепахи дивергировали от ранних капториноморфов (Captorhinida), или это сестринские группы. Другие авторы [6] выдвигают гипотезу о черепахах как о группе, сестринской завроптеригиям, причем оба эти таксона кладут в основу лепидозавроморфной филогенетической линии. Широкую поддержку находит и мнение о паререптилийной природе черепах и их близкородственных связях с проколофонами [16] или парейазаврами [18]. Современные молекулярно-генетические исследования вносят еще большую сумятицу, относя черепах то к лепидозавроморфным, то к архозавроморфным рептилиям [22].
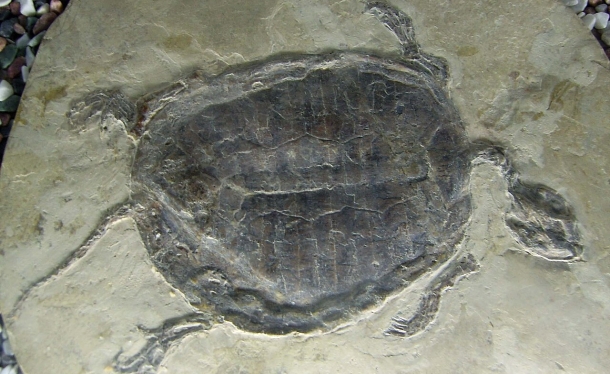
Ископаемые остатки древнейших черепах долгое время были известны только из отложений позднего триаса Германии [7]. Отсюда описаны две формы: хорошо изученный по нескольким полно сохранившимся скелетам проганохелис (Proganochelys) и известный только по панцирю протерохерсис (Proterochersis). Проганохелис, по наличию у него примитивных черт в строении черепа (полная крыша, небные зубы) и панциря (большое число щитков и пластинок), был выделен в особую базальную группу черепах - Proganochelydia. Сходство по некоторым признакам протерохерсиса и бокошейных черепах позволило рассматривать эту форму как близкую к предкам Pleurodira.
С конца прошлого века география находок триасовых черепах стала расширяться. Они были обнаружены в Таиланде [4], Гренландии [13], Аргентине [20], Китае [19] и США [14]. Таким образом, уже в позднем триасе черепахи были многочисленны, разнообразны и широко распространены. Триасовая фауна черепах насчитывала несколько хорошо очерченных родов (Proganochelys, Proterochersis, Palaeochersis, Chinlechelys, Odontochelys), причем, по-видимому, это представители не только разных таксономических, но и экологических групп: водные и наземные формы.
Наиболее значимым палеонтологическим открытием последнего времени является описание одонтохелиса (Odontochelys semitestacea) из верхнетриасовых морских отложений Юго-Западного Китая [19]. Эта черепаха отличается от всех ранее известных форм комплексом уникальных признаков. Ее череп заметно удлинен, а челюсти несут зубы. Пластрон хорошо сформирован и почти консолидирован (имеются лишь узкие медиальные фонтанели), в то время как карапакс демонстрирует значительное недоразвитие. Реберные пластинки слабо расширены и не контактируют между собой, краевых пластинок нет. Как полагают авторы, исследовавшие одонтохелиса, эта форма показывает промежуточную ступень эволюции панциря и ассоциированных с ним структур. Однако не исключено, что своеобразное строение посткраниального скелета одонтохелиса может иметь и другое объяснение. Морской генезис местонахождения и широкие приспособленные к гребле конечности указывают на водную специализацию этой черепахи. Следовательно, рудиментарное состояние ее карапкса может быть не первичным (примитивным) признаком, а вторичным, приобретенным в результате редукции до этого более консолидированного панциря. Как показывают палеонтологические данные, процесс подобной редукции был характерен для многих водных черепах.
Несмотря на значительный прирост палеонтологических данных, они не проливают свет на проблему происхождения черепах. Эта проблема по-прежнему остается одной из самых сложных и интригующих в филогении позвоночных. По нашему мнению, ее решение кроется не только в получении новых палеонтологических данных (появление которых часто являются делом случая), но и в анализе сведений, уже имеющихся в области других биологических наук, в частности генетики и биологии развития.
Внезапное появление палеонтологической летописи и отсутствие выраженных переходных форм между черепахами и «типичными» тетраподами позволило предполагать, что становление таксона черепах произошло в результате очень быстрых морфологических изменений, т.е. сальтационно [10]. Изначально теория сальтаций была создана на базе представлений, что ведущую роль в появлении макротаксонов играют крупные мутации, порождающие «успешных монстров». Однако исследования в области биологии развития показали пороговый характер многих морфогенетических реакций, доказав, что даже незначительные сдвиги в генетической программе развития могут приводить к существенным преобразованиям в строении взрослого организма.
Проведенные в последние годы генетические исследования показали, что при онтогенезе панциря не выявляется экспрессия специфичных для черепах генов [15]. Это позволяет сделать заключение о модификацированном характере генетического регуляторного механизма их развития. Согласно такому взгляду, в эволюции черепах произошло изменение степени участия общих для амниот регуляторных генов в контроле морфогенетических процессов, а не вовлечение в эти процессы новых генов, которые были бы свойственны только черепахам.
Модификационные изменения в генетической программе предков черепах неизбежно выразились в преобразовании их морфологического типа - в переформировании скелета туловища в панцирь. Это подтверждают морфогенетические исследования, согласно которым все элементы панциря черепах представляют собой не более чем модификации костей базального скелета тетрапод [1]. Позвоночные и реберные пластинки - это разросшиеся в дерме невральные дуги позвонков и рёбра; пластинки пластрона - видоизмененные гастралии, ключицы и межключицы; краевые, надхвостовые и хвостовая пластинки - типичные рептилийные остеодермы. Нетипичное положение поясов конечностей у черепах, на которое всегда обращалось особое внимание, имеет простое объяснение с точки зрения морфогенеза. Оно обусловлено редукцией межрёберной мускулатуры и разрастанием рёбер (в виде реберных пластинок) в дермальном слое кожи карапакса, что и приводит к перекрыванию этими преобразованными элементами осевого скелета расположенных под кожей костей грудного и тазового поясов.
Появление свойственных черепахам генетических и морфогенетических новаций, по-видимому, могло произойти относительно быстро, поскольку оно не потребовало создания новых структур с собственной генетической базой. Таким образом, модификационный характер генетических реакций, которые мы наблюдаем в ходе развития панциря, а также обусловленные ими модификации в посткраниальном скелете могут служить существенными аргументами в пользу гипотезы быстрого эволюционного становления общего плана строения черепах - тестудинатного морфотипа.
Работа поддержана АВЦП «Развитие научного потенциала высшей школы (2009-2010 гг.)» №2.2.3.1.2456.