Новый представитель триониксов из позднего мела Монголии
С 1946 г. в течение нескольких лет в Монгольской Народной Республике работала советская палеонтологическая экспедиция, снаряжённая Палеонтологическим институтом Академии наук СССР, под руководством проф. И. А. Ефремова. Этой экспедицией обследованы обширные пространства Монголии и открыты богатейшие местонахождения остатков ископаемых фаун мезозоя и кайнозоя. Собранные большие коллекции представлены главным образом остатками различных динозавров, многочисленных пресноводных и сухопутных черепах, а также млекопитающих.
Изучение материалов, накопленных Монгольской палеонтологической экспедицией Академии наук СССР, имеет первостепенное значение для познания истории фауны и палеогеографии не только Монголии, но и соседних с ней территорий Советского Союза и Китая, являвшихся в древнейшие времена областью возникновения и расселения разнообразных фаунистических комплексов.
Большую часть коллекционных сборов советской экспедиции составляют остатки различных черепах, которые представляют большой палеонтологический интерес и могут служить в качестве надёжных руководящих форм для стратиграфии осадочных толщ. В связи с разработкой вопросов палеогеографии остатки этих своеобразных животных могут играть немалую роль также в качестве характерных индикаторов былых условий среды.
Данная статья отражает результаты обработки части монгольских палеонтологических материалов, относящихся к пресноводным черепахам-триониксам. Эти черепахи составляют особый отряд, представители которого характеризуются, в частности, отсутствием на панцире рогового покрова, заменённого мягкой кожей, в силу чего их часто называют мягкими черепахами.
Материал по триониксам, собранный экспедицией АН СССР, включает один почти полный спинной щит черепахи средней величины из отложений верхнего мела и серию фрагментов панцирей разных форм, преимущественно также позднемелового и, в небольшом количестве, олигоценового возраста. По сохранившемуся спинному щиту описывается новый вид трионикса, существовавший в позднем мелу, тогда как фрагментарный материал используется в данном случае лишь попутно, в целях некоторых сопоставлений.
Род Amyda Schweigger, 1809
Amyda: Schweigger in Geoffroy de St. Hijaire. Ann. Mus. Hist. nat. Paris, 14, 1, 1809.
Типовой вид — Amyda javanica Schweigger = Amyda cartilaginea (Boddaert), 1770.
Диагноз. В спинном щите отсутствуют краевые пластинки. Рёберных пластинок семь или, чаще, восемь пар. Как правило, семь позвоночных пластинок, из которых последняя наименьших размеров. У некоторых форм встречается предпозвоночная пластинка*; с подлежащим позвонком она не срастается. В брюшном щите девять пластинок, частично разобщённых крупными фонтанелями. Гиопластроны отличаются по форме от гипопластронов, с которыми они соединяются швами. В черепе значительно простираются вперёд открытые височные впадины. Чешуйчатые и затылочные кости образуют сильно разрастающийся назад костный вырост в виде каудально заострённого медиального гребня. Орбиты расположены ближе к височным впадинам, чем к носовым отверстиям. Хоаны находятся на уровне орбит.
Замечания. Таксономические отношения описанных в разное время родов триониксов до сего времени представляют много неясного и требуют общей ревизии. Одну из серьёзных попыток разобраться в систематике этих черепах предпринял в своё время К. Гуммель (Hummel, 1929), с которым можно согласиться по поводу упразднения некоторых неосновательно выделенных родов и рассмотрения ряда из них на правах лишь подродов. В этом плане у нас наибольший интерес вызывают соображения о систематической близости таких родов, как Amyda, Platypeltis, Aspideretes, к представителям которых более или менее близок и описываемый нами вид. Кажется весьма оправданным объединение всех этих трёх родов в один. В таком случае, однако, возникает затруднение с выбором правильного родового наименования для такой объединённой группы. Весьма часто ещё и сейчас этих и ряд близких к ним черепах, или только часть их, относят к роду Trionyx Geoffroy*. В действительности же, в соответствии с правилами таксономической номенклатуры, это название следует связывать с некоторыми черепахами, выделяемыми по меньшей мере в особое подсемейство, что весьма ясно представлял себе, например, О. Хэй (Hay, 1908), а позже отмечали некоторые специалисты в области систематики рецентных черепах (Lindholm, 1929; Mertens и Wermuth, 1955).
По ряду соображений мы считаем целесообразным принять для обозначения группы наиболее близких друг к другу триониксов родовое название Amyda. Считая, что в состав этого же рода следует, по-видимому, включать и тех черепах, которых именуют как Platypeltis, Aspideretes, мы соответственно расширили диагноз данного рода.
Таксономические различия между отдельными родами триониксов устанавливались главным образом лишь на основе изучения особенностей строения панциря. Для черепах панцирь играет огромную роль, поэтому каждое существенное изменение в его строении справедливо связывать с появлением в разные моменты эволюции новых видов или даже родов. Однако для вполне законченного суждения о таксономических отношениях разных форм нужно принимать во внимание и другие важные признаки, в частности характеризующие строение не только наружного (панцирь), но и внутреннего скелета. В этом же направлении существенную пользу может принести сравнительное изучение микроструктуры скелетных элементов разных черепах, что, например, с немалым успехом удалось применить и нам в исследованиях современных и вымерших черепах.
Объём рода Amyda, особенно в принятых здесь его таксономических границах, весьма значителен. Он охватывает несколько десятков вымерших и современных видов, общее географическое распространение которых простирается на все материки. Наиболее древние представители этой родовой группы были известны из отложений верхнего мела. Однако сравнительно недавно Ф. Бергунью описал новый вид под названием Trionyx primoevus Berg. из кимериджа Парижского бассейна (Bergounioux, 1937), а известные китайские палеонтологи Ян Чжун-цзян и Чжоу Мин-чен обнаружили в составе интереснейшей мезозойской фауны Сычуани новый род Simaspideretes Young et Chow, также относящийся к данным триониксам. Сычуанская фауна датируется ими (Young a. Chow, 1953) предположительно как позднеюрская. Кимериджский возраст трионикса из Парижского бассейна тоже не может пока считаться бесспорным, однако все эти данные представляют большой интерес как свидетельство того, что триониксы имеют, по-видимому, весьма древнее происхождение.
* Например, в сводке Г. Вермута и Р. Мертенса (Wermuth u. Mertens, 1961).
AMYDA ORLOVI KHOSATZKY, SP. NOV.
Видовое название дано в честь академика Ю. А. Орлова.
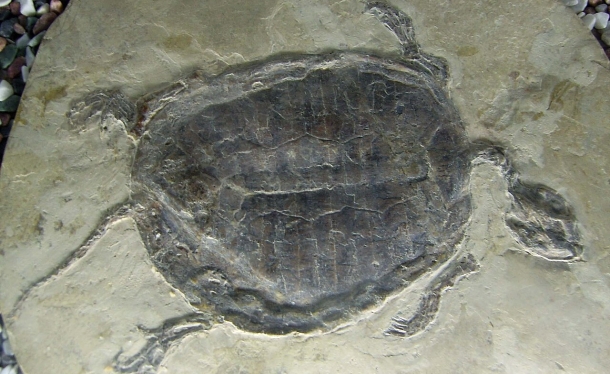
Голотип. Хранится в Палеонтологическом институте АН СССР; ПИН — № 557-I/I; спинной щит (карапакс); МНР, Вост. Гоби; верхний мел, сеноман.
Диагноз. Панцирь округлой формы. Загривковая пластинка широкая. Первая позвоночная пластинка горупная, её длина в два раза превышает собственную ширину. Вторая — четвёртая позвоночные пластинки шестиугольные, расширенные на задних концах. Пятая — четырёхугольная, удлинённая. Шестая — расширенная на переднем конце, шестиугольная. Последняя, седьмая позвоночная — маленькая, пятиугольная. Она вклинивается между шестыми и седьмыми рёберными пластинками обеих сторон. Первые рёберные пластинки, весьма широкие в своих проксимальных частях, круто суживаются на дистальных концах. Вторые — четвёртые рёберные не обнаруживают клиновидности. Пятые характеризуются умеренным расширением на дистальных концах, а шестые — значительным. Седьмые рёберные с изгибом охватывают небольшие восьмые.
Описание. Длина карапакса по средней линии (без загривковой пластинки, отсутствующей на образце) — 200,0*. Наибольшая ширина карапакса 220,0. Загривковая пластинка должна быть широкой и тесно прилегающей к первым рёберным пластинкам. Длина позвоночных пластинок по средней линии (последовательно от первой до седьмой) — 42,4; 28,2; 26,7; 26,0; 23,0; 21,5; 10,5. Ширина первой позвоночной пластинки на её переднем крае — 49,8, на заднем — 21,3, посередине — 16,9. Следующие три позвоночные пластинки вытянуты в длину и расширены на задних концах; их размеры (в числителе — ширина переднего края по сочленению с предыдущей пластинкой, в знаменателе — наибольшая ширина на заднем крае каждой пластинки): II — 6/19,0; 12,0/17,8; 10,8/—. Пятая позвоночная пластинка по своим очертаниям напоминает бочонок; ширина её на переднем крае 11,0, на заднем — 10,8, наибольшая посередине — 13,5. Шестая позвоночная обращена расширением вперёд, где это максимальное расширение составляет 15,6, в то время как ширина на заднем крае равна 5,0. Последняя цифра показывает также ширину переднего края маленькой пятиугольной последней пластинки позвоночного ряда; её наибольшая ширина 9,4; назад она обращена углом.
Рёберные пластинки характеризуются умеренной степенью удлинения (отношение длины к ширине каждой пластинки); их длина по задним краям (измерялась по левой стороне карапакса) соответственно от первой до восьмой составляет: 85,0; 102,8; 105,7; 104,0; 91,5; 57,0; 34,7; 28,0. Соотношение ширины этих же пластинок на их проксимальных концах (указывается в числителе) и на дистальных краях (в знаменателе) позволяет судить о степени большей или меньшей клиновидности каждой из них: 33,0/—; 28,2/36,3; 28,6/31,6; 26,5/38,8; 27,8/43,6; 23,0/37,3; 20,8/16,5; 12,5/28,0. В месте встречи правой и левой восьмых рёберных пластинок на заднем крае карапакса имеется небольшая треугольная вырезка. Дистальные (свободные) концы рёбер всюду утрачены, но, судя по строению внутренней поверхности рёберных пластинок, рёбра должны были заметно выдаваться наружу из-под краёв этих пластинок.
*Здесь и далее все размеры даются в миллиметрах.
Все кости панциря на поверхности имеют развитую скульптировку, характерную для триониксов. Она имеет вид сети довольно равномерно распределённых ячеистых вдавлений, которые на дистальных частях рёберных пластинок принимают довольно упорядоченное расположение. В этих местах ячейки, следуя друг за другом, образуют ряды, параллельные внешним краям рёберных пластинок. У самых этих краёв поверхность пластинок лишена скульптуры, в силу чего по обводу карапакса протягивается гладкий бордюр шириной до 5,0—8,0 на боковых краях спинного щита.
Измерения толщины костей карапакса показали, что панцирь трионикса обладал известной массивностью. Так, у дистальных краёв рёберных пластинок эта толщина составляет в разных местах 4,3—5,0. Толщина, например, шестой позвоночной пластинки оказалась равной 4,5. Толщина панциря в этих же местах у современного представителя триониксов Amyda trinngis (Forsk.) по величине тела, равного описываемому здесь экземпляру, оказалась в среднем на 1 мм меньше. Это вполне согласуется с тем, что нам удалось отметить в отношении эволюционных изменений панциря всех вообще черепах — оказалось, что у более древних форм панцирь грубее и толще, чем у филогенетически молодых.
Рассматриваемый здесь панцирь монгольского трионикса принадлежал молодой, хотя, по-видимому, и половозрелой особи. В пользу такого предположения свидетельствуют следующие особенности его строения. У наружных краёв первых рёберных пластинок, в местах соединения их с первой позвоночной пластинкой, заметны следы небольших фонтанелей, в связи с чем загривковая пластинка в этих местах не соприкасалась с краями первых рёберных. Данный признак указывает на то, что формирование карапакса в процессе его роста ещё не вполне завершилось. Задний край карапакса слегка закруглённый, а не прямо усечённый, как это свойственно панцирям старых особей большинства триониксов. В скульптуре рёберных пластинок не наблюдается резкого различия по форме и величине ячеистых углублений. У старых триониксов в направлении к дистальным концам этих пластинок ячейки становятся более крупными и вытянутыми, что соответствует их ориентировке в сторону роста кости. Наиболее интенсивно это происходит на периферии пластинок.
В связи с вопросом о возрастной стадии развития исследуемого карапакса следует отметить и особенности его общего очертания. Характерный для него округлый контур с несколько даже большим развитием панциря в ширину также типичен именно для молодых черепах.
С возрастом форма тела у всех черепах меняется от преимущественно расширенной в начале роста к округлой на более поздних стадиях и, наконец, к удлинённо-овальной. У триониксов на примере форм, обитающих в дальневосточных районах СССР, а также в Китае, эти возрастные изменения были специально изучены С. А. Черновым (1930). Оказалось, что молодые китайские черепахи Amyda sinensis (Wiegm.) характеризуются почти круглым карапаксом, по мере роста он у них становится овальным и, в конце концов, принимает удлинённые очертания.
Сравнение. В составе рода Amyda, имея в виду принятый здесь его объём, можно, по-видимому, выделить несколько подродов, в частности собственно Amyda, а также Aspideretes и Platypeltis. Не касаясь специальной разработки внутриродовой систематики этих черепах, отметим следующее. Представители форм, относимых к Aspideretes, были широко распространены в мелу, однако ряд их морфологических признаков (наличие, например, предпозвоночной пластинки и др.) заставляет воздержаться от причисления к ним нового вида. Отличается последний и от форм, объединяемых под названием Platypeltis, у которых имелось лишь семь пар рёберных пластинок на карапаксе. Наверное, правильнее всего будет считать монгольского верхнемелового трионикса представителем подрода Amyda, что соответственно заставит признать этих черепах более древними, чем это принималось раньше, так как обычно возникновение типичных Amyda связывают с началом палеогена.
Древнейшими триониксами до недавнего ещё времени считались североамериканские формы, однако, как справедливо отметил К. Гуммель (Hummel, 1929), родину данных черепах вовсе не обязательно было искать именно в Северной Америке. Находки подтверждают, что в Азии их также было, вероятно, немало уже в мелу, а возможно даже в конце эры. Судя по всему, именно в Старом Свете, скорее всего как раз в Азии, и находился первоначальный центр возникновения и развития этой группы.
К. Гуммелем в сводке данных об ископаемых триониксах указано лишь на несколько скудных находок остатков этих черепах из пределов Азии (Hummel, 1929). В настоящее время они известны из многих мест Азиатской части Советского Союза (Хозацкий, 1957, 1958), а также для ряда районов Китая.
Сравнение описываемого здесь трионикса из позднего мела Монголии со всеми известными меловыми и кайнозойскими представителями этих черепах убедило в несомненной таксономической самостоятельности нового вида. Наибольший интерес в плане такого сравнения вызывали, разумеется, другие триониксы, существовавшие в прошлом в Монголии и на смежных территориях. Для меловых отложений остатки каких-то триониксов указывались из соседних с Монгольской Народной Республикой районов Внутренней Монголии (Китайская Народная Республика).
Однако кроме упоминания об этих остатках (Gilmore, 1931) ничего большего о них в литературе не сообщалось.
Несколько видов триониксов было описано по остаткам из третичных отложений пограничных с МНР районов Внутренней Монголии. Один из них — Amyda johnsoni Gilm., обнаруженный в местонахождении Ирдин Манга, является позднеэоценовым, т. е. по своему геологическому возрасту оказывается относительно близким описываемому нами виду. Однако от последнего трионикс из Ирдин Манга отличается рядом существенных признаков (Gilmore, 1931). Так, позвоночные пластинки у него с боков сжатые, относительно более узкие, чем у Amyda orlovi; своеобразную форму имеет, в частности, шестая позвоночная, очень узкая, с почти параллельными краями. Седьмые рёберные пластинки весьма широкие, особенно на дистальных концах, в то время как у нового вида они более узкие. Различаются эти оба трионикса и по характеру скульптуры костей панциря. У Amyda johnsoni костные пластинки покрыты снаружи неглубокими, неправильными по форме (приближённо округлыми) ямками, распределёнными по поверхности панциря неравномерными скоплениями. По краям карапакса, соответственно дистальным концам рёберных пластинок, скульптуры почти нет. У Amyda orlovi эти ямки-вдавления оказываются более глубокими и расположенными довольно правильно, к периферии панциря они не исчезают, а, наоборот, становятся более отчётливыми. Восточнее Ирдин Манга были ещё найдены мелкие фрагменты спинных щитов триониксов в отложениях, пограничных между палеоценом и эоценом (формация Аршанто), однако эти остатки не были определены.
В районе Ирен Дабасу Азиатской экспедицией Американского музея естественной истории было обнаружено сравнительно редкое скопление в одном месте 14 панцирей триониксов, половина из которых находилась в массе заключавшей их породы в тесном соединении друг с другом. Вместе с частями панцирей здесь же лежали черепа, позвонки, кости конечностей и поясов. Горизонт, в котором найдены эти остатки, датируется средним олигоценом (формация Хульджиин). Все остатки оказались принадлежащими черепахам одного вида, представленного в этом скоплении особями разного возраста и состоявшими в своём объединении как бы в единое стадо, что и дало повод Ч. Гилмору (Gilmore, 1934), описавшему этот вид, назвать его Amyda gregaria Gilm. В действительности же, однако, трудно допустить, чтобы данное захоронение возникло в результате одновременной гибели какого-то стада этих черепах. Вероятнее всего, что в силу каких-то причин в этом районе имела место массовая смертность черепах, трупы которых могли сноситься потоками и скапливаться на одном участке.
Панцирь черепахи из Ирен Дабасу обращает на себя внимание вытянутостью в длину, что, по-видимому, связано не только с возрастом, но является и видовым признаком. Своеобразной особенностью карапакса следует считать то, что его боковые края на значительном протяжении почти параллельны друг другу и довольно прямые, что наблюдается на панцирях как взрослых, так и молодых черепах этого вида. Боковые края карапакса Amyda orlovi заметно выпуклы. Первая позвоночная пластинка у этого трионикса явно превосходит по величине следующие, тогда как у Amyda gregaria такой разницы не наблюдается. Существенны также различия между этими черепахами по форме их рёберных пластинок. Уже отмечалось, что у Amyda orlovi седьмые рёберные к своим дистальным концам суживаются и охватывают несколько вытянутые в ширину небольшие восьмые пластинки этой серии. У Amyda gregaria седьмые рёберные в дистальном направлении значительно расширены, а восьмые развиты примерно одинаково как в длину, так и в ширину. Эти особенности панциря Amyda gregaria хорошо видны и на опубликованных фотографиях, в то время как на приведённых автором графических реконструкциях щитов показаны как раз обратные соотношения в строении названных пластинок. Приходится вообще заметить, что и некоторые другие реконструкции, представленные в работах Ч. Гилмора, не отличаются достаточной точностью.
Третий вид триониксов из Внутренней Монголии (Gilmore, 1931), Trionyx sculptus Gilm., относимый к плиоцену (формация Тунг Гур), имеет расширенный карапакс, отличающийся значительной величиной (более полуметра в длину). Вдоль его средней линии заметно вдавление. Структура поверхности костей панциря образована сравнительно неглубокими угловатыми ямками и прерывистыми гребнями у дистальных концов пластинок. Кроме того, по наружным краям рёберных пластинок тянется довольно широкая полоса, лишённая скульптуры. Все эти признаки, а также особенности формы позвоночных и рёберных пластинок явственно отличают данный плиоценовый вид от описываемого здесь позднемелового, чего, конечно, и следовало ожидать. Существенно отличается выделенный нами новый монгольский вид и от прочих мезозойских и кайнозойских триониксов Китая (Yeh Hsiang-kuei, 1963), а также других стран.
Распространение. Описанный здесь панцирь монгольского трионикса был найден в районе плато Баин-Ширэ, расположенного на окраине широкой впадины Дулан-Гоби, на расстоянии 100 км к ЮЮЗ от Сайн-Шанда, центра Восточно-Гобийского аймака Монгольской Народной Республики. Круто обрывающиеся в названную впадину обнажения открывают здесь выходы верхнемеловых пород с костеносными конгломератами. Описавший это местонахождение И. А. Ефремов (1949, 1954) указывает на то, что в многометровой толще обнажающихся здесь пород имеется несколько костеносных горизонтов (основных три), из которых нижний, в частности, буквально переполнен остатками черепах. Среди них встречаются и триониксы, к числу которых принадлежит новый вид.
Нижний костеносный горизонт Баин-Ширэ сложен конгломератами с мелкой кварцевой галькой и песком. Помимо остатков черепах, в этих слоях общей мощностью 1—2 м встречаются также кости небольших динозавров. Выше залегают рыхлые песчаники, толщи глин и слои песков. В основании верхней части данного разреза находится верхний костеносный горизонт с массой костей динозавров, в том числе панцирных их представителей — анкилозавров, описанных Е. А. Малеевым (1956).
Интересующие нас отложения, в которых были обнаружены остатки нового трионикса, относятся к широко распространённому в Восточной Гоби комплексу слоёв мощной баинширэинской свиты (Маринов, 1957).
Сравнивая анкилозавров, остатки которых были добыты в отложениях верхнего костеносного горизонта Баин-Ширэ, с представителями этой группы, известными из верхнего мела Северной Америки, Е. А. Малеев (1952, 1956) приходит к заключению о том, что анкилозавровые слои Монголии соответствуют отложениям формаций Ланс, Хэлл-Крик и Эдмонтон. Первые две формации относятся к датскому ярусу, а последняя — к верхам сенона (Reeside, 1932). Однако ещё И. А. Ефремов (1957) высказался за понижение возраста костеносных горизонтов Баин-Ширэ, которые А. К. Рождественский (1957) и отнёс к низам верхнего мела. В результате специального изучения стратиграфии Монгольской Народной Республики, производившегося рядом геологов (Васильев и др., 1959), сделано заключение о том, что баинширэинская свита должна считаться сеноман-туронской. В соответствии с этим нижний костеносный горизонт Баин-Ширэ с черепахами и мелкими динозаврами (черепаховый горизонт по И. А. Ефремову, 1954), находящийся в основании баинширэинской свиты, следует приурочивать именно к сеноману. А. К. Рождественский (1968) установил, что вся баинширэинская динозавровая толща Монголии должна датироваться сеноманом и может сопоставляться, в частности, с известной формацией дакота, представленной верхнемеловыми песчаниками внутренних областей Северной Америки (Reeside, 1932).
Отложения Баин-Ширэ аналогичны формации Ирен-Дабасу во Внутренней Монголии. Для нас в данном случае это положение представляет особый интерес потому, что в отложениях Ирен-Дабасу сотрудниками палеонтологической экспедиции Американского музея естественной истории было обнаружено несколько фрагментов панцирей ближе не определённых триониксов. По свидетельству Гилмора (Gilmore, 1934), эти триониксы могут быть отнесены к трём или четырём видам, и не исключено, что один из них идентичен описанному здесь Amyda orlovi из сеномана Восточной Гоби.
Материал. Помимо карапакса, принятого в качестве голотипа Amyda orlovi sp. nov. и найденного в 1946 г. в Баин-Ширэ, там же был обнаружен ещё небольшой фрагмент пластрона, возможно относящийся к тому же виду. Монгольские триониксы изучались нами с учётом и ряда других материалов. Приведём краткий перечень их с тем, чтобы представить самую общую картину распространения данных черепах в прошедшие геологические эпохи на территории Монголии.
Наибольшее количество остатков черепах верхнего мела и среди них, в частности, триониксов Монгольская палеонтологическая экспедиция Академии наук СССР обнаружила в крупнейшем местонахождении Нэмэгэту, находящемся в Южной Гоби. Здесь, собственно говоря, на значительном пространстве обширной котловины сосредоточено несколько местонахождений остатков многочисленных позвоночных мела и эоцена. Остатки триониксов были добыты экспедицией в 1948 г. в южной и северо-западной частях данного района. Всего здесь собрано около 160 фрагментов панцирей триониксов. В местонахождении Цаган-Хушу (бывш. Цаган-Ула), расположенном на южном краю котловины Нэмэгэту, найдено ещё примерно 100 различных фрагментов панцирей и конечностей триониксов. Эти остатки почти лишены следов окатки и в ряде случаев представлены скелетными комплексами, принадлежавшими в таких сочетаниях каким-нибудь одним особям, что свидетельствует о незначительных переносах потоками захоронявшегося материала.
Советской палеонтологической экспедицией на территории МНР обнаружены остатки также и третичных триониксов. Они были собраны в той же нэмэгэтинской котловине, в серых песках, относящихся к средним и верхним горизонтам нижнего эоцена, в местонахождении Цаган-Хушу, и в конкрециях, наполненных костями также эоценового возраста, в районе р. Улан-Булак. Небольшое количество остатков олигоценовых триониксов собрано в интересном местонахождении Эргиль-Обо, которое в работах посетивших его в своё время американских палеонтологов фигурирует под неточным названием Ардын-Обо. Пункт Эргиль-Обо находится в Восточно-Гобийском аймаке и представляет собой обрыв, сложенный серией косослоистых гравийников и песчаников. Здесь было собрано очень много остатков третичных млекопитающих и сухопутных черепах.
Кроме сборов экспедиции Академии наук СССР, нами были изучены некоторые материалы по монгольским ископаемым черепахам, собранные в разное время другими экспедициями. Несколько фрагментов своеобразных триониксов нашлось, в частности, в материалах, доставленных В. К. Чайковским из северо-восточных районов МНР, где он работал как геолог, исследуя верховья рек Толы, Онона и Керулена (1935).
В двадцатых годах текущего столетия на территории Монгольской Народной Республики и соседних районов Китая работала, как уже отмечалось, палеонтологическая экспедиция Американского музея естественной истории под руководством Р. Ч. Эндрюса. Среди различных материалов, собранных этой экспедицией, имеются и остатки триониксов из меловых отложений Ирен-Дабасу и Он-Гонг, из верхнего эоцена Ирдин-Манга, Улан-Ширэ и Шара-Мурен, из отложений среднего олигоцена формации Хульджиин и верхнего плиоцена формации Тунг-Тур. Все эти находки сделаны за пределами МНР, во Внутренней Монголии. На территории же Монгольской Народной Республики американские палеонтологи нашли лишь несколько фрагментов панцирей триониксов в местонахождении Эргиль-Обо (Ардын-Обо). Таким образом, начало изучению триониксов МНР положено работами советских палеонтологов, а описание мезозойских представителей этих черепах из пределов Монголии предпринимается вообще впервые.
На протяжении верхнего мела, а затем и палеогена триониксы широко населяли обширные пространства Монголии. Изучение фациального характера отложений, заключающих ископаемые остатки этих животных, показывает, что населявшаяся ими область представляла собой ландшафтно-географическую зону, для которой были характерны значительные бассейны озёрного, дельтового и лиманного типа. Именно такие условия и являются наиболее благоприятными для существования триониксов.
Среди черепах триониксы занимают совершенно исключительное положение, являясь своеобразными «земноводными» пресмыкающимися. Они не могут оставаться вне воды в продолжение сколько-нибудь значительного времени. Эта особенность образа жизни триониксов связана с тем, что газообмен осуществляется у них не только лёгкими, но также с помощью особого глоточно-нёбного дыхательного аппарата и кожных покровов. Кожное дыхание этих черепах (оно обнаружено нами в результате специальных морфологических и физиологических исследований — Хозацкий, 1957, 1967) требует постоянного увлажнения покровов. Без этого значительная проницаемость кожи при наличии развитой субэпителиальной капиллярной сети приводит к сравнительно быстрому физиологическому иссушению организма и гибели. Отсутствие у этих черепах, как и у прочих рептилий, слизистой секреции покровов делает необходимым для них наличие воды даже в большей степени, чем для амфибий, причём вода должна быть достаточно чистой, богатой кислородом. В пересыхающих, заиленных или загрязнённых водоёмах они не живут. Естественно, что указанные особенности биологии данных животных должны приниматься во внимание и при воссоздании картины той обстановки, в которой они существовали в прежние времена.
Географическое распространение современных и вымерших триониксов приурочено во всём мире главным образом к приморским областям или, во всяком случае, к местностям повышенного увлажнения. Наличие этих, а также ряда других водных черепах в мелу Монголии свидетельствует о том, что в конце мезозоя на её территории ещё не существовало, как это считали раньше, сплошных пустынных пространств. Там, наоборот, должны были находиться достаточно обширные бассейны, о чём, в частности, как замечает И. А. Ефремов (1949), «...неоспоримо свидетельствует также изобилие черепах, представленных водными формами, в том числе такими типичными обитателями больших бассейнов, как триониксы». На это же указывают многочисленные остатки рыб, крокодилов, пресноводных моллюсков и, наконец, гигантских травоядных зауропод и траходонтов (гадрозавров), относившихся к тем динозаврам, которые могли обитать лишь в прибрежной зоне крупных водоёмов.
Общий характер изученных советской палеонтологической экспедицией местонахождений остатков позднемеловых фаун Гоби показывает, что накопление значительных костных масс могло происходить там в результате сноса трупов мощными потоками с дальнейшим захоронением их и накоплением фоссильного материала в дельтовой зоне. Рядом с обширными позднемезозойскими бассейнами, на местах нынешней пустыни произрастали леса, о чём свидетельствуют находимые здесь массы огромных окаменевших стволов деревьев. Таким образом, вопреки сложившимся представлениям о раннем опустынивании Гоби, приходится признать, что в действительности это произошло сравнительно недавно, т. е. во всяком случае в послемезозойские времена. В этой связи существенно, что интересующие нас триониксы, наряду с другими гидрофильными животными, обитали в Монголии ещё и в олигоцене, а возможно и позже. Однако в основном, по-видимому, именно в конце палеогена в этих районах Азии начали происходить ландшафтно-климатические изменения в сторону общей аридизации с дальнейшим распространением фронта опустынивания Палеарктики в направлении её северных и западных провинций. История триониксов, обитавших в мелу и в третичном периоде в пределах нашей страны (Хозацкий, 1957), а также в других областях Азии и Европы, свидетельствует об этом достаточно ясно.
Васильев В. Г., Волхонин В. С., Гришин Г. Л., Иванов А. Х., Маринов Н. А., Мокшанцев К. Б. 1959. Геологическое строение Монгольской Народной Республики. Л., Гостоптехиздат, с. 1—494.
Ефремов И. А. 1949. Предварительные результаты работ I Монгольской палеонтологической экспедиции АН СССР 1946 года. Тр. Монгольской комиссии АН СССР, вып. 38: «Материалы по геоморфологии и палеонтологии», с. 5—28.
Ефремов И. А. 1954. Палеонтологические исследования в Монгольской Народной Республике. Тр. Монгольской комиссии АН СССР, вып. 59: «Сборник работ по палеонтологии Монгольской Народной Республики», с. 3—32.
Ефремов И. А. 1957. К тафономии ископаемых фаун наземных позвоночных Монголии. Vertebrata Palasiatica, vol. 1, No 2, p. 83—102.
Малеев Е. А. 1952. Некоторые замечания о геологическом возрасте и стратиграфическом распределении панцирных динозавров Монголии. ДАН СССР, т. 85, № 4, с. 893—896.
Малеев Е. А. 1956. Панцирные динозавры верхнего мела Монголии. Тр. Палеонтол. ин-та АН СССР, т. 62, с. 51—91.
Маринов Н. А. 1957. Стратиграфия Монгольской Народной Республики. М., Изд-во АН СССР.
Рождественский А. К. 1957. Краткие итоги изучения ископаемых позвоночных Монголии. По материалам Монгольской палеонтологической экспедиции Академии наук СССР в 1946—1949 гг. Vertebrata Palasiatica, vol. 1, No 3, p. 169—185.
Рождественский А. К. 1968. Изучение динозавров Монголии и их роль в расчленении континентального мезозоя.
Хозацкий Л. И. 1957. К истории черепах-триониксов в Казахстане. Изв. АН КазССР, сер. биол., вып. 2 (14), с. 15—30.
Хозацкий Л. И. Современное и прошлое распространение черепах в СССР. «Проблемы зоогеографии суши», Матер. совещ. по зоогеограф. суши, июнь 1957 г., Львов, изд-во Львовск. гос. ун-та, с. 319—324.
Хозацкий Л. И. 1967. Кожное дыхание водных черепах. «Видовые и природно-климатические адаптации организма животных. Физиолого-генетические исследования», Реф. докл. III Всесоюзн. совещ. по эколог, физиологии, биохимии и морфологии, Новосибирск, с. 135—138.
Чайковский В. К. 1935. Новые данные о геологии центральной части Монгольской Народной Республики. Пробл. сов. геол., вып. 1.
Чернов С. А. 1930. О дальневосточных и китайских черепахах. ДАН СССР, А, № 10, стр. 251—255.
Bergounioux F.-M. 1937. Cheloniens fossiles du Kimeridgien du Cap de la Heve. Bull. Soc. Hist. Nat. Toulouse, t. 71, p. 180—191.
Gilmore C. W. 1931. Fossil turtles of Mongolia. Bull. Amer. Mus. Nat. Hist., vol. 59, art. 4, p. 213—257.
Gilmore C. W. 1934. Fossil turtles of Mongolia: Second contribution. Amer. Mus. Novitates, No 689, p. 1—14.
Hay O. P. 1908. The Fossil turtles of North America. Carnegie Inst. of Washington, No 75, p. 1—568.
Hummel K. 1929. Die fossilen Weichschildkröten (Trionychia). Geol. u. Palaeont. Abhandl., N. F., Bd. 16, H. 5, s. 360—487.
Lindholm W. A. 1929. Revidiertes Verzeichnis der Gattungen der rezenten Schildkröten nebst Notizen zur Nomenklatur einiger Arten. Zool. Anz., Bd. 81, H. 11/12, s. 275—295.
Mertens R. u. Wermuth H. 1955. Die rezenten Schildkröten, Krokodile und Brückenechsen. Zool. Jb., (System.), Bd. 83, H. 5, s. 323—440.
Reeside J. 1932. Stratigraphic nomenclature in the United States. Intern. Geol. Congr., XVI sess., Guidebook 29, Washington, p. 1—5.
Wermuth H. u. Mertens R. 1961. Schildkröten. Krokodile. Brückenechsen. VEB G. Fischer Verlag, Jena, s. 1—422.
Yeh Hsiang-k’uei. 1963. Fossil turtles of China. Palaeontologia Sinica, No 150, N.S., C, No 18, p. 80—112.
Young Chung-chien a. Chow Min-chen. 1955. New fossil reptiles from Szechuan, China. Acta Sci. Sin., Vol. 2, p. 216—243.