Широко распространено представление, что кожные покровы пресмыкающихся в силу значительного ороговения их эпидермиса лишены способности участвовать в газообмене. В действительности же кожное дыхание в известной мере присуще некоторым рептилиям. Оно было установлено, в частности, для некоторых змей [1, 10], ящериц [8] и водных черепах [2, 3].
В настоящее время можно утверждать, что у большинства, если не у всех, пресноводных черепах (в некоторой степени, возможно, даже у морских) в той или иной мере выражены кожная респирация и эктраренальный водный обмен через покровы в местах тела, свободных от панциря (участки мягкой, сравнительно тонкой кожи главным образом в области шеи, в подмышечных и паховых впадинах). Это было показано, например, для отдельных представителей пресноводных черепах семейства Emydidae [9, 11]. Нам удалось установить, что, в частности, у болотной черепахи — Emys orbicilaris (L.) при нахождении под водой газообмен осуществляется за счет участия в этом процессе слизистой выстилки ротовой полости, анальных пузырей и поверхности мягких участков кожи. Общая величина потребления кислорода этим путем составляет 0,72—0,93 мг в час на литр воды [3]. Сходные данные были получены и для каспийской черепахи — Mauremys caspica (Gm.)[5].
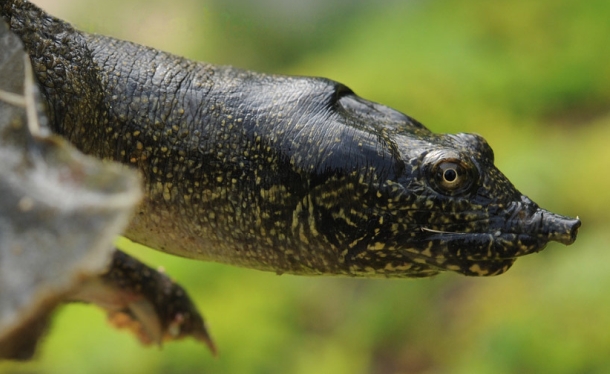
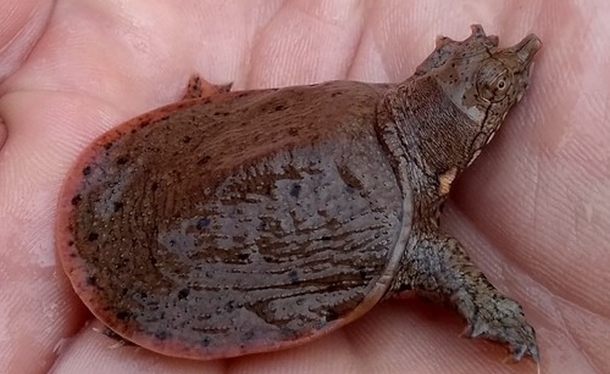
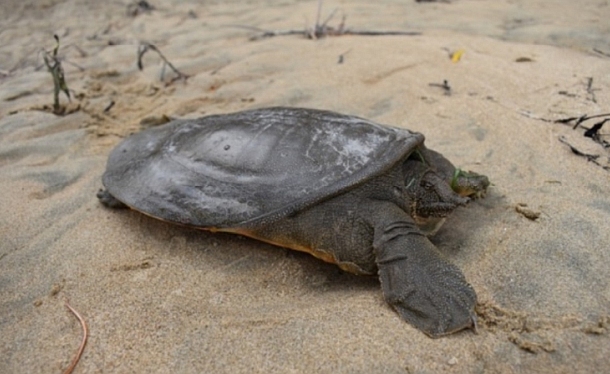
Наиболее удивительными в рассматриваемом аспекте оказались своеобразные во многих отношениях, особо специализированные пресноводные черепахи-триониксы (отряд Trionychia), которых нередко именуют мягкими или мягкокожими в связи с совершенно необычной чертой их организации — отсутствием на поверхности тела, в том числе и в области панциря, роговых щитков и выраженных эпидермиса. Данное обстоятельство тесно связано с обнаруженными нами у этих животных достаточно интенсивным кожным газообменом [2, 3, 4], который изучался на серии взрослых и молодых особей дальневосточной черепахи — Trionyx sinensis Wiegm., отловленных на озере Ханка. Впоследствии кожное дыхание было установлено и у других представителей отряда Trionychia [7].
Ранее было известно, что у триониксов наряду с весьма совершенным легочным дыханием существует еще и своеобразное так называемое букко-фарингеальное (небно-глоточное), обусловленное наличием богато васкуляризованных специальных выростов слизистой выстилки ротоглотки [6].
Наши опыты показали, что при нахождении под водой взрослые триониксы потребляют за час 1,23—1,57 мг кислорода на литр воды, что обеспечивается как названным букко-фарингеальным аппаратом, так и кожей. На долю собственно кожного газообмена приходится при этом около 2/3 и более (0,76—0,96 мг кислорода на литр воды в час) от общего количества кислорода, потребляемого организмом в этих условиях экстрапульмональным, то есть нелегочным, путем. Молодые (до 2-х лет) триониксы потребляют кислород этим способом под водой в еще больших количествах. Выяснилось также, что кожный газообмен (потребление кислорода и выведение углекислоты) в некотором объеме осуществляется наряду с легочным дыханием и при нахождении черепах вне воды.
Открытие кожного дыхания у триониксов сделало понятными многие особенности их строения и экологии. В данном плане выяснилось прежде всего значение мягких кожных покровов со сравнительно тонким эпидермисом. Оказалось, что такая кожа триониксов обладает усиленной васкуляризацией не только трофического, но и респираторного назначения. В свою очередь это объяснило и функциональное назначение типичной для всех триониксов своеобразной рельефной (ячеисто-гребнистой) скульптуры поверхности костных элементов их панциря. Такой рельеф обеспечивает тесную фиксацию на костной основе панциря вышележащих слоев мягкой кожи с разветвлениями в ней капилляров, которые предохраняются этим от опасности рызрывов. Разрывы периферических капиллярных сетей могли бы происходить, если бы мягкая кожа обладала подвижностью относительно нижележащих костных пластинок панциря, через которые кровеносные сосуды проходят из глубин тела на поверхность. Заметим, что рельефная скульптура наружной стороны покровных костей наблюдается и у некоторых других рептилий, например у крокодилов. Там она, однако, имеет иную структуру и служит закреплению на костях роговых щитков.
Можно предположить, что появление в эволюции триониксов над их костным панцирем мягкой кожи вместо рогового щиткования было вызвано необходимостью обеспечить демпферный эффект ламинаризации водного потока при быстром движении во время плавания. В дальнейшем к этому могло присоединиться также развитие усиленной васкуляризации в мягкой коже, принявшей на Себя дополнительную функцию газообмена.
Наличие в покровах триониксов особых приспособлений для кожного газообмена следует связывать с присущей им чрезвычайно интенсивной двигательной активностью, вызывающей повышенные энергетические потребности. Эти потребности обеспечиваются усиленным газообменом, часть которого осуществляется в дополнение к легочному дыханию еще и газообменом кожным, а также букко-фарингеальным. Экстрапульмональные аппараты газообмена у триониксов не только существенно повышают их жизненную активность в целом, но и позволяют им, в частности, подолгу пребывать под водой (до 10—15 часов). В то же время именно эти приспособления обусловливают тесную привязанность триониксов к воде, которую они не могут покидать на продолжительное время из-за опасности значительной перспирации. Этих черепах можно образно назвать «земноводными пресмыкающимися».