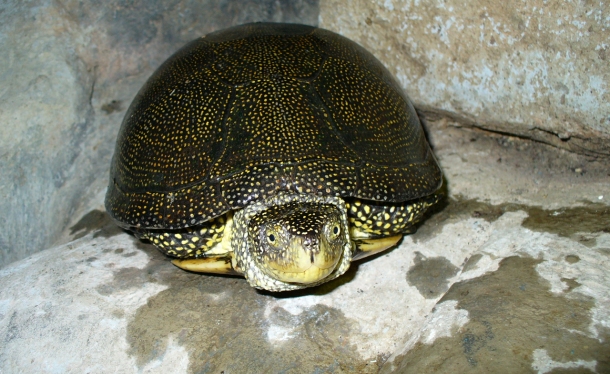
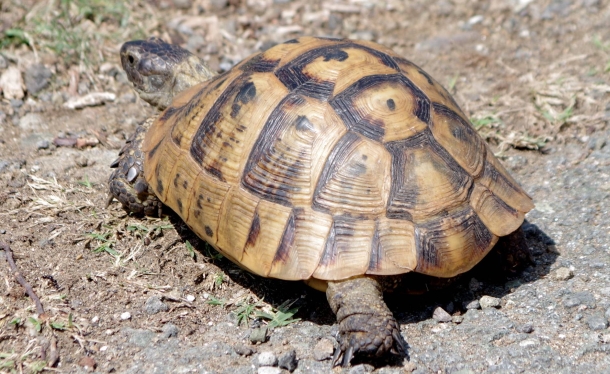
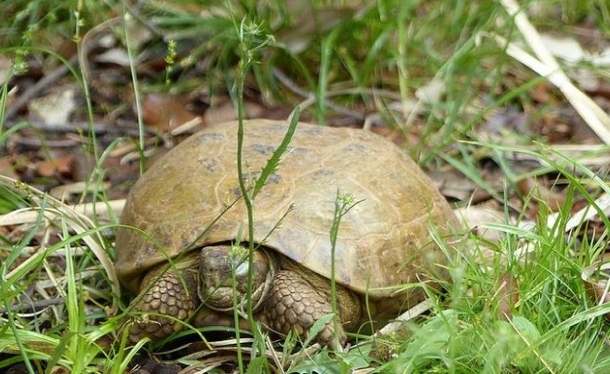
Изучение средиземноморской черепахи (Testudo graeca) заслуживает самого пристального внимания. Этот вид внесен в Красную книгу Международного союза охраны природы и природных ресурсов (IUCN, 1979), Красные книги СССР (1984), РСФСР (1983) при статусе вида, находящегося под угрозой исчезновения. По Черноморскому побережью Кавказа на южных склонах Главного кавказского хребта в зоне сухих субтропических лесов обитает особый подвид средиземноморской черепахи - Т. graeca nikolskii Ckh. et T. (Чхиквадзе, Туниев, 1986). Этот недавно описанный подвид заметно отличается по морфологическим и экологическим признакам от средиземноморских черепах, обитающих в восточной части Главного кавказского хребта и в Закавказье (Алекперов, Хозацкий, 1971; Иноземцев, 1983; Иноземцев, Перешкольник, 1985идр.). Морфология, экология, особенности размножения средиземноморской черепахи, половая и возрастная структура разных ее популяций изучены относительно хорошо (Банников, 1951; Lambert, 1982; Иноземцев, 1983, 1991,1993,1995,1998а,б; Иноземцев, Перешкольник, 1985,1987 и др.). В тоже время такие вопросы как пространственная структура популяции, сезонные особенности миграций и т.п. мало изучены.
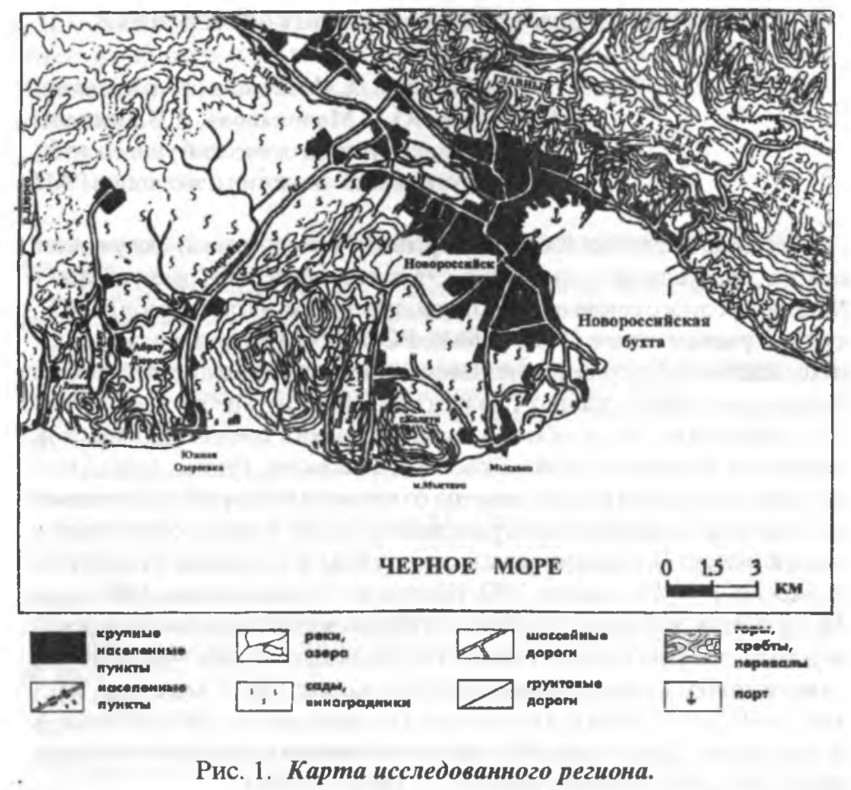
Полевые исследования черепахи Никольского велись нами преимущественно в дальних окрестностях г. Новороссийска, в угодьях Новороссийского лесничества, простирающихся от поселка Южная Озереевка на северо-западе до поселка Мысхако на юго-востоке. Наибольший объем материала был собран у пологого ущелья, называемого Широкой балкой, на склонах гор Колдун и Амзай (рис. 1). Склоны гор здесь покрыты в основном низкорослыми дубово-грабовыми лесами с примесью древовидного можжевельника. Среди леса встречаются редколесья и редины с отдельными деревьями и куртинами древовидного можжевельника, держидерева, фисташки и др.
Кустарничковый ярус представлен куртинами низкорослого жасмина. Травяной покров сложен осоками, злаками, разнотравьем; он не имеет сплошного распространения и перемежается с открытыми каменистыми, щебнистыми участками. Эти так называемые “поляны”, вероятно, образовались на местах старых гарей. Поляны привлекают черепах как места, хорошо прогреваемые лучами солнца. Здесь с ранней весны происходят контакты особей противоположного пола . В последствии самки устраивают тут гнездовые камеры на самых теплых местах. Учеты встречаемости черепах во всех районах полевых работ показали, что черепахи явно предпочитают склоны гор южной экспозиции - это один из абиотических факторов, определяющих основные условия обитания вида (Кузякин, 1979).
При изучении черепах, которые проводились с 1981 г., животные метились краской и (или) красящей жидкостью фломастеров (при повторной встрече меченых особей метки освежались). Расположение пятна краски на соответствующих щитках карапакса позволяло нумеровать меченых черепах до трехзначных чисел. На основе этого производилась идентификация особей. Красочные пятна не исчезали в течение двух лет и обычно были различимы по прошествии трех лет (а иногда четырех и более лет). Поэтому опознавание особей было возможным в последующие годы*. Это позволяло следить за развитием особей, изменениями их местоположения и т.п. Максимальный период между мечением и повторной (последней) встречей составил 155 месяцев.
Повторные встречи черепах случались через разные промежутки времени после мечения, поэтому невозможно было судить о характере суточных перемещений животных, направлении и мотивах этих перемещений. В целом, чем больше был срок между находками особей, тем больше возрастало расстояние между этими находками. Только в одном случае одна черепаха была найдена за 2 километра от места мечения; в среднем (без этой повторной находки) черепахи уходили от места мечения на 144,6 метра; при периоде между находками в 0—12 месяцев среднее расстояние составило 106,3 м, при 73—155 месяцев - 341,5 м.
Однако эти данные мало о чем свидетельствуют, и пути перемещений черепах оставались неизвестными. В связи с этим было решено предпринять попытку использовать методы экологической радиотелеметрии для прослеживания суточных перемещений черепах.
* Чему способствовали легко опознаваемые и всегда регистрировавшиеся отклонения в строении панциря (лишний щиток, слившаяся пара шитков и т.п.) или его дефекты (старая пробоина, обломанные костные пластинки и т.п.).
Для средиземноморских черепах был выбран способ приклеивания передатчика к задней части карапакса акрилоксидом - материалом, из которого дантисты делают временные зубные пломбы. Работать с ним трудно из-за очень быстрого отвердевания, но это положительно сточки зрения малого времени удерживания животного в руках. Отвердевший акрилоксид держит передатчик на панцире очень прочно.
Опираясь на опыт радиомечения средиземноморской черепахи в 2000 г. (когда впервые была использована специально разработанная для черепах модель передатчика) для полевых работ в 2001 г. были изготовлены 3 новых радиопередатчика, более подходящих для черепахи в местных условий рельефа и растительности ксерофитных лесов Западного Кавказа. В частности, конструкция передатчиков была изготовлена на более совершенных пьезокристаллах, позволяющих увеличить дистанцию радиоприема и меньше реагировать на “затенение” сигнала перегибами рельефа и густой растительностью. Во-вторых, была усовершенствована система антенн передатчиков. Обычно при мечении, например, млекопитающих так называемые “противовесы” собственно антенны, которые должны располагаться как можно ближе к телу животного, монтировались под ошейниками. На черепахах эти противовесы (два монтажных проводка длиной 10—12 см) приклеивали по краю панциря. Возможно, большая изоляция между проводками и телом получалась из-за панциря, возможно из-за “холоднокровности” черепах, но эффекта от наличия противовесов антенн на животных почти не было. Пришлось усиливать антенный контур и снять противовесы. Устанавливать такой передатчик стало проще и быстрее. Скорость установки очень важна, поскольку акрилоксид быстро твердеет. Стоимость каждого изготовленного передатчика составила около 100 долларов США.
В мае 2001 г. также использовался один передатчик, который работал весной 2000 г., лишь был заменен элемент питания.
Была также частично изменена система антенн (“вибрисс”) приемника. Это было вызвано тем, что черепахи часто забирались в опушечные совершенно непролазные заросли держидерева, ежевики и других колючих растений, переплетенных вьющимися растениями. В связи с этим антенны должны быть полностью складывающимися. На близком расстоянии, благодаря модернизации передатчиков, они пеленговались даже при полностью сложенных антеннах.
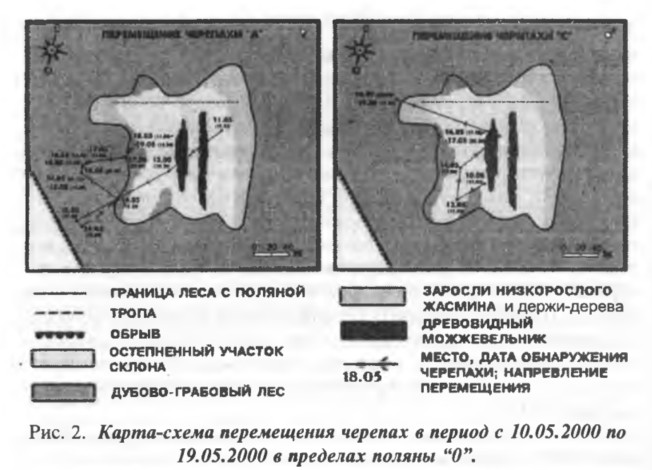
Напомним, что весной 2000 г. были помечены передатчиками две черепахи: самец “С” (Длина карапакса - L= 17,1см; масса - m= 1020г; число “годовых” колец - к = 18), который прослеживался в течение 9 суток, и самка “A” (L=22,3CM, т=2500г, к =17), пеленговавшаяся 8 суток. В некоторые дни черепахи разыскивались по несколько раз в день, что позволяло судить о суточной активности этих животных: они могли перемещаться в течение всего дня после прогрева на солнце и до вечерней темноты (рис.2).
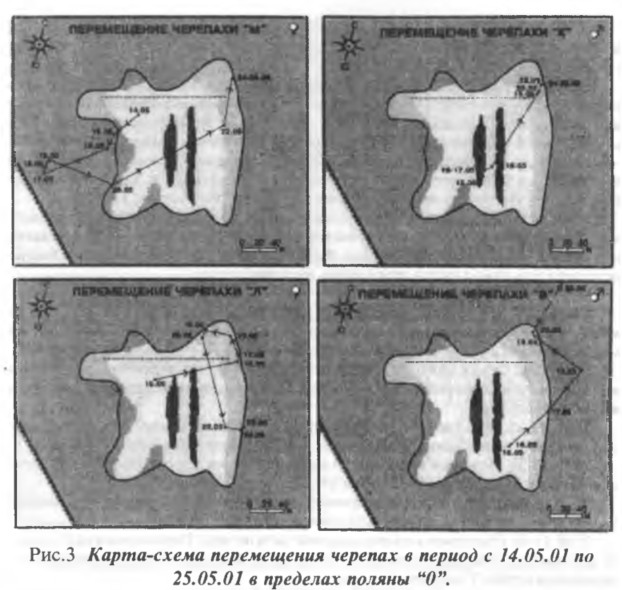
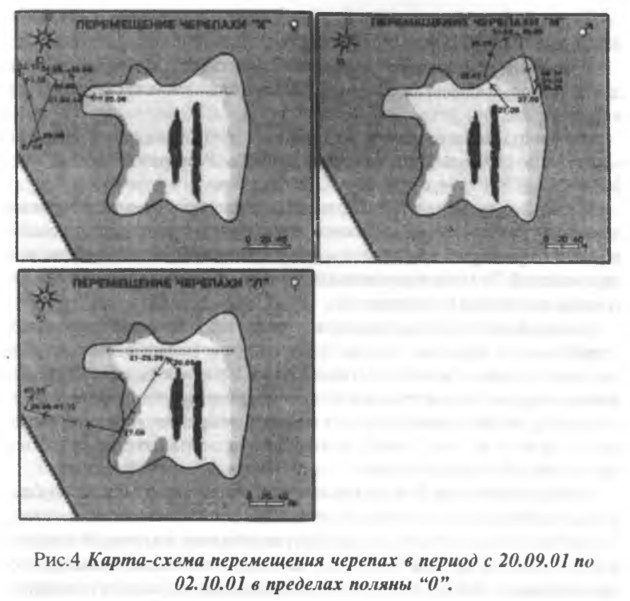
В 2001 г. были организованы две экспедиции с радиопеленгацией средиземноморских черепах. Весной с 14 мая по 25 мая прослеживались 4 черепахи (рис.З), а осенью - 3 черепахи с 20 сентября по 3 октября (рис.4). Ниже приводится первичный полевой материал находок меченных передатчиками животных.
Самка “M” (L=21.1см: m=2150г: к=21). Крупная особь, найдена 14 мая 2001 г. в 14-00 в северо-западной области “поляны” - старой гари с редколесьем из древовидного можжевельника и держидерева, с подлеском из низкорослого жасмина, с травянистыми участками, зарастающими осоками, злаками, с преобладанием ковыля. Сидела в тени держидерева среди сухих стеблей прошлогоднего ковыля. Последующие находки:
14.05. 16-30. Переместилась на 2м к западу и спряталась под кустом держидерева среди низкорослого жасмина.
15.05. 11-30. Переместилась в юго-западном направлении, вниз по склону к границе леса, вошла в лес на 1,5м; всего преодолела расстояние в 37м. Находилась под низким деревцем граба со стелющимися по земле ветвями.
15.05. 12-30. Вошла в лес на 10 м. Зарылась в толщу сухих прошлогодних листьев дуба.
16.05. 12-18. Переместилась по лесу в том же направлении, вниз по склону на 19м. Найдена под валежиной в грабиннике на опаде дубовой листвы. Тело было прохладным, т.е. в этот день она не двигалась.
17.05. 11-00. Переместилась на 70 м 7 юго-западном направлении. Грелась на солнце на крутом склоне, покрытом щебнем. Была тёплой. Т.об., она перешла через гребень горы, покрытый лесом, и вышла на открытые щебнистые участки склона.
18.05. 10-31. Находилась на крутом щебнистом склоне, местами поросшем кустарниками шиповника и можжевельника. Питалась. За сутки ушла на 15м поперек склона на северо-запад.
19.05. 11-00. Передвинулась на 4 м вверх по склону. Сидела в полутени кустов грабинника. Будучи обнаруженная начала уползать под куст.
20.05. 10-47. Переместилась на расстояние 57м в юго-восточном направлении поперек склона, чуть ниже, ближе к южной части поляны. Зарылась в сухую листву дуба под небольшим кустом парикового дерева.
22.05. 11 -30. Ушла выше по склону, на 153 м на северо-восток, пересекла поляну по диагонали. Сидела в разреженных кустах можжевельника, держидерева и низкорослого жасмина. Грелась в полутени.
24.05. 10-30. Переместилась на 60м в том же направлении, чуть выше по склону к границе леса. В кустах можжевельника и держидерева зарылась слой опада, прошлогодней сухой травы и листвы.
25.05.10-46. Находилась на том же месте, что и в предыдущую находку (накануне). Передатчик снят.
Самец “К” (L = 17.1см: m = 1200г: к = 151. Впервые найден и помечен передатчиком 15.05. в 13-00. Обнаружен в тени очень густого мягколиственного можжевельника, среди не менее густых зарослей низкорослого жасмина. Тело холодное.
16.05.12-47. Находился под густыми раскидистыми можжевельниками, зарылся в опад можжевельника. Тело холодное. За сутки переместился на 20м наискось по склону вверх в юго-восточном направлении. В течение 30 минут наблюдений зарывался ещё глубже под лежащую на земле ветку и прошлогодний опад.
17.05.11-25. Был на прежнем месте, но зарылся ещё глубже. Тело холодное.
18.05. 10-50. Переполз поперек склона на 19м через щебнистое русло пересохшего водотока. Находился под сухим стволом древовидного можжевельника в кустах низкорослого жасмина. Тело тёплое.
19.05.12-01. Переместился на 205м к опушке леса в верхней части поляны, на северо- восток. Обнаружен на тропе, протоптанной черепахами, среди высокой травы и кусгов держидерева.
20.05.11 -20. Поднялся ещё на 7м вдоль опушки леса. Зарылся в прошлогодний опад в густых кустах низкорослого жасмина под держидеревом.
22.05. 11-45. Переместился на 10м в юго-восточном направлении, вероятно, обогнув очень густой куст держидерева. Сидел среди кустов держидерева, жасмина и пр., т.е. в самых густых зарослях экотона на опушке поляны, граничащей с лесом.
24.05. 11-30. Находился в лесу (в грабиннике) в Зм от места предыдущей встречи. Зарылся в толщу дубового опада.
25.05. 11-13. Находился на том же месте,ещё глубже зарылся в листву. Передатчик снят.
Самка "Л" (L = 15.9см: m = 900г: к = 17). Найдена 15.05 в 15-00 в западной области поляны, грелась на солнце у кустов низкорослого жасмина.
16.05. 13-30. Поднялась наискось по склону в северо-восточном направлении на 102м. Была зарыта в траву, освещенную солнцем, поблизости от кустов держидерева в 30м от границы леса.
16.05. 14-25. Ползла в тень куста держидерева и зарылась там в траву.
17.05. 12-40. Находилась в очень густых кустах держидерева в 4 м выше по склону от места предыдущей встречи. Спала в зарослях низкорослого жасмина под более высокими непроходимыми кустами. Тело было теплое.
18.05. 11-53. Переместилась вдоль опушки поляны вверх на 23 м. Находилась в осоке между кустами держидерева. Теплая.
19.05. 14-10. Обнаружена у опушки леса у верхнего, северо-восточного, края поляны в 30м от места прежней находки. Под кустом держидерева в зарослях густой травы и кустиков низкорослого жасмина.
20.05. 12-20. Переместилась вниз на 5 м в южном направлении, сидела в кусте низкорослого жасмина под густыми кустами держидерева.
22.05. 12-50. Спустилась вниз на 112 м в юго-восточном направлении. Грелась на солнце, сидя на камне. Панцирь бьш очень теплыни. Через 10 мин. уползла в тень под куст держидерева.
24.05. 12-20. Переместилась к восточному краю поляны на 18 м. Была зарыта в прошлогоднюю траву в очень густом кустарнике низкорослого жасмина под держидеревом на самой границе поляны и леса.
25.05. 11-14. Вошла в лес на 2 м. Ползла вверх в северном направлении среди прошлогодней листвы дуба. Передатчик снят.
Самец “В” (L = 17.8см: m =1300г: к = 19-201 Найден 15.05. в 15-45 спящим в зарослях низкорослого жасмина под раскидистым париковым деревом. Поставлен передатчик.
16.05. 15-05. Переместился на З м на север и почти полностью зарылся в дернину травы (преимущественно осоки) среди кустиков низкорослого жасмина.
17.05. 11-40. Переполз на 40 м наискось вверх по склону в северо-восточном направлении почти к самой опушке леса. Зарылся в листву под густыми кустами держидерева. Тело холодное.
18.05. 11-23. Поднялся по склону через полоску леса на небольшую полянку у гребня пологого хребта. Переместился на 57 м в прежнем направлении. Сидел в тени маленького куста держидерева среди кустиков низкорослого жасмина.
19.05. 13-06. Вернулся на поляну №0 через лес, преодолев 60м в северо-западном направлении. Обнаружен в густой траве среди кустов держидерева и низкорослого жасмина.
20.05. 11-50. Отполз на З м выше вдоль опушки, находился в тени травы в зарослях низкорослого жасмина.
22.05. 14-00. Переместился далеко (на 325 м) от поляны “0” через лес на маленькую полянку в северном направлении. Бодрствовал в разреженном травостое под кустом можжевельника. Передатчик снят. Это было вызвано тем, что три меченые черепахи сосредоточились в восточной части поляны, а у черепах “В” и “К” были очень близкие резонансные частоты передатчиков, что очень затрудняло пеленгацию.
В конце сентября—начале октября 2001 г. были продолжены работы по радиопрослеживанию средиземноморской черепахи в тех же местах, где это делалось весной. Передатчиками были помечены 3 черепахи, поскольку четвертый передатчик вышел из строя.
Самка “Л” (L = 21.8 см: m = 2400г: к = 14-15). Обнаружена 20.09 в 14-00 в густых зарослях можжевельника. Была зарыта в сухую траву и опад, примерно в центре поляны. Поставлен передатчик. Судя по остаткам клея на панцире, по-видимому, это была черепаха, которую прослеживали весной 2001 г.
21.09. 17-50. Находилась под большим кустом держидерева, на треть тела зарывшись в землю. Переместилась на 35 м в северо-западном направлении.
22.09. 12-20. Сидела на прежнем месте в том же положении.
23.09. 12-40. Находилась там же, положение тела не изменилось.
24.09. 13-30. Обнаружена на том же месте, в прежнем положении.
25.09. 12-50. Положение не изменилось.
27.09. 12-55. Спустилась вниз по склону в южном направлении на 100 м. Обнаружена в очень густых приопушечных зарослях низкорослого жасмина, головой ориентирована в центр куста, по направлению к поляне.
29.09. 12-40. Спустилась ещё ниже через лес и по щебнистой осыпи на 250 м в северо-западном направлении. Остановилась в 1,5м от почти отвесного обрыва, на треть тела была зарыта в почву и на две трети была закрыта сухой лозой дикого винограда.
01.10. 12-40. Находилась в том же месте в прежнем положении.
02.10. 12-30. Поднялась по склону на 25 м в направлении к лесу - на северо-восток. Обнаружена на границе леса и осыпи под грабинником, на треть тела была зарыта в толстый слой листового опада. Была очень активна. Передатчик снят. Сразу после этого ещё глубже зарылась в лесную подстилку. Возможно, это место её будущей зимовки (?).
Самка “X” (L = 19.2 см: m = 1500г: к = не менее 15). Обнаружена и помечена 20.09. в 15-30 в пределах северо-западной оконечности поляны. Сидела в полутени разреженного куста держидерева, зарывшись наредней частью тела на две трети в опад. Рядом - тень от низкорослого жасмина.
21.09. 18-00. От места нарвой находки отползла на 25м. Ушла с поляны в низкорослый грабинник на склоне горы. Находилась в неподвижном состоянии, но наред обнаружением пыталась зарыться в почву. Разгребла ямку, где и находилась.
22.09. 12-10. Обнаружена на прежнем места, в том же положении. Судя по форме ямки, не пыталась зарыться глубже.
23.09. 13-30. Отползла в лес на 30м вниз по склону в северо-западном направлении, сидела в кустах низкорослого грабинника, зарывшись в опад.
24.09. 12-00. нареместилась на 28м от места прежней находки. Грелась на солнце, находясь на щебнистой осыпи у леса.
25.09. 12-30. Обнаружена на склоне гребня. нареместилась на 15м вверх по склону в восточном направлении. Сидела под грабинником в 20 саотиметрах от явного места ночевки, зарывшись в лиственный опад.
27.09. 11-45. нареместилась вниз по склону на 78м на юг. Найдена в лесу достаточно далеко от поляны. Сидела, зарывшись на треть тела в опад, под обломком толстой ветви грабинника.
29.09. 13-15. нареместилась от места предыдущего обнаружения на 15м в направлении поляны (на севeро-восток). Грелась в просвете крон деревьев, вытянув голову. Сидела в ямке, окруженной опавшей листвой. Несмотря на позднее время, была холодной. В 2 - 3 метрах от нее обнаружена чётко выраженная рытвина, которая могла быть местом ночевки.
30.09. 13-30. Спустилась по склону горы на 75м за пределы леса на опушку. Грелась на солнцепеке среди густых запрослей низкорослого жасмина у держидерева. При приближении человека изменила положение тела, чтобы лучше видеть. Тело теплое.
02.10. 13-45. Отползла на 20м к северо-западу. Сидела в густой заросли низкорослого жасмина и держидерева, грелась в солнечных лучах, проходящих сквощь редкие ветви кустарника. Голова вытянута, тело теплое. Радиопередатчик снят. Сразу после этого быстро поползла в тень низких кустов держидерева, туи и грабинника.
Самец “М” (L = 16.6 см: m = 910 г: к = 17). Обнаружен 21.09. в 17-40. Был найден между двумя большими камнями среди сухой травы в 1,5м от густой тени древовидного можжевельника в верхней, северной оконечности поляны. Поставлен радиопередатчик.
22.09. 13-00. Отполз на 46м на северо-восток, вверх. Сидел на верхней опушке поляны в густых порослях низкорослого грабинника, под относительно большим деревом среди высокого сухотравья.
23.09. 13-25. Поднялся вверх по склону, вошел в лес, переместившись на 40м от прежнего места обнаружения. Зарылся в лиственный опад под большим грабинником.
24.09. 12-30. Поднялся ещё выше по склону в лесу на 32м от предыдущего места обнаружения. Был почти полностью (на 3/4) зарыт в лесную подстилку.
25.09. 13-15. Обнаружен в 1,5м от прежнего места. Сидел в опаде литвы в грабиннике под деревом. Бодрствовал, по тело было холодным.
27.09. 15-40. Обнаружен в сeвеpо-западной части поляны. Переместился на 67м вниз, на юго-восток. Находился в высоком сухом травостое среди кустов держидерева и низкорослого граба. Тело теплое. Активна.
29.09. 13-50. Переместился на 10м на север к границе лесе в самые непроходимые “экотонные” заросли держидерева, низкорослого жасмина, высокого злакового травостоя. Находился в кустике жасмина среди травяного сухостоя.
01.10. 14-00. От прежнего места переместился на 5,5м вверх по опушке. Находился в густой заросли низкорослого жасмина среди кустов держидерева. Бодроствовал. При приближении человека развернулся головой к лесу.
02.10. 14-00. Отполз к лесу на 2,5м. Был зарыт на треть тела в опад и почву, часть тела была скрыта куском гнилого ствола.
03.10. 14-35. Находился на прежнем месте, слегка развернувшись. Передняя треть тела была зарыта в толстый слой почвы. Возможно, это Окончательное место будущей зимовки (?). Передачтик снят.
Обсуждение материала.
В 2000 г. были получены данные по 17 черепахо-суткам радиопрослеживания. За два года (2000 и 2001) собраны материалы по 91 черепахо-суткам, по двум годам и двум сезонам, что дает возможность сравнительного анализа, а также повышает обоснованность получаемых выводов.
Перемещения черепах во всех трех полевых нариодах были относительно однотипными. Все помеченные половозрелые особи перемежали периоды активной подвижности и отдыха, т.е. нахождения на одном и том же места или передвижения на считанные метры.
Максимальная дальность перемещения зафиксирована у черепахи "В" — 325м за двое суток: 21-22.05.01., т.е. в среднем 162,5 м/сутки. Чуть меньший результат был у "А"—222м за двое суток 13-14.05.00. или 111 м/сутки; 13.05.00 она преодолела 187м.
Если говорить о средней дальности перемещений в течение непрерывных периодов наблюдений, то этот показатель был заметно меньше осенью (25,01 м /сутки) по сравнению с весенними периодами (37,09 м/сутки). Вероятно, несколько большая активность перемещений весной связана с периодом спаривания и большей половой активностью особей.
Этот же показатель весной в 2000 и 2001 гг. различался очень незначительно: 33,53 и 38,68 м/сутки соответственно.
Удивительно, что совершенно отсутствовала разница средней дистанции перемещений у самцов (32,38 м/сутки) и самок (32,26 м/сутки), в среднем - 32,31.
Индивидуальные различия этого показателя были также небольшими - от 17,04 до 69,70 м/сутки, но чаще - ближе к 30 метрам в сутки: 23,83; 26,90; 29,60; 29,89; 34,17; 37,63 и 37,91 м/сутки.
Как видно, средние показатели активности перемещений у черепах достаточно стабильные. Это позволяет предположить, что каждая особь обладает примерно одинаковым энергетическим потенциалом для перемещений. Это подтверждают и периоды отдыха последальних и даже средних дистанций перемещений.
По характеру перемещений можно отметить, что черепахи заметно "привязаны" к опушкам "полян" и леса. Густые непролазные заросли экотонов создают для животных прекрасные защитные условия. Хотя все меченые передатчиками черепахи были отловлены на поляне, часто близко к её центру, это не характеризует их постоянное предпочтение открытых мест - просто их там можно найти, а на экотонах это совершенно невозможно без передатчиков.
Осенью отмечалась большая склонность черепах закапываться глубже в подстилку и даже в почву (весной они не закапывались в почву). Вероятно, осенью сказывался инстинкт поиска мест зимовки. В осенний нариод у черепах при снятии передатчиков отмечалось место последнего пребывания особей для того, чтобы в следующем году попытаться найти зимовальные норы.
Поляна, где метились черепахи, занимала почти всю обширную достаточно плоскую котловину, окруженную пологими хребтиками- водоразделами. Общий уклон - к морю, обычно крутизна составляет 10— 20 градусов. Примерно посередине поляны проходит сухой тальвег временного водотока. Крутизна склонов минимальна в цеотре поляны, к хребтикам крутизна увеличивается, склоны хребтиков обычно покрыты лесной растительностью. С северо-западной стороны от поляны за водоразделом начинался очень крутой склон в долину ручья, местами покрытый щебнистыми осыпями без растительности.
Примечательно, что помеченные передатчиками черепахи нередко покидали поляну, переваливали через хребтики, уходили на небольшие открытые участки или в лес, иногда на щебнистые осыпи, но всегда без исключения возвращались на поляну или её опушку, часто пересекали поляну. Это позволяет сделать достаточно обоснованное предположение, что с этой поляной связана некая определенная микропопуляция черепах. Данное предположение подтверждает и то, что меченые фломастерами животные в прежние годы часто встречались повторно на той же поляне. В 2001 г. были встречены все черепахи, которые носили передатчики в 2000 г. Об этом можно было судить по остаткам акрилоксида на панцирях черепах.
Существование постоянных микропопуляций черепах, связанных с определенной местностью подтверждает и тот факт, что окраска панциря на охарактеризованной выше поляне и в районе Южной Озереевки и Северной Озереевки заметно различалась. На поляне склона г. Колдун и в различных местообитаниях у Широкой Балки панцири встречавшихся черепах были светлыми, в серовато-бежевых, охристых тонах и как бы с налетом ржавчины. Точно такие же оттенки имело большинство обнаженных камней известняка и доломита, встречавшихся повсюду в лесу и на полянах. В районе же Озереевок панцири черепах были существенно темнее, серо-пепельных, аспидных тонов, точно как преобладающие здесь куски сланцев, которыми сложены окружающие горы. Такое проявление мимикрии значительно повышает защитные свойства животных.
Образование подобных микропопуляций, связанных с конкретными местами спаривания или/и размножения, достаточно часто встречаются у наземных позвоночных животных. Например, токовыми являются микропопуляции глухарей и тетеревов, группы "точков" - мест рева благородного оленя и т.п. Однако если у оленей и многих других копытных животных места проявления брачного поведения и спаривания можно рассматривать как атрибут проявления территориального поведения самцов, то тока глухарей и тетеревов - это признак временной потери макротерриториального поведения (у самцов проявляется лишь микротерриториализм на самом току). При этом самки во всех этих случаях совершенно не проявляют территориального поведения. Таким образом, по поведению средиземноморская черепаха, как представитель пресмыкающихся, гораздо ближе к птицам, чем к млекопитающим, что оправдано большей эволюционной близостью пресмыкающихся и птиц.
Микропопуляции, образующиеся вокруг "общественных" мест спаривания и размножения, делают вид животных более уязвимым, чем животных территориальных, моногамов и прочих видов без заметных признаков образования микропопуляций. "Цеотры притяжения" микропопуляций обычно очень постоянны и особи одной микропопуляции весьма консервативно "привязаны" к таким местам. Так, если вырубается лес на места глухариного тока, микропопуляция разрушается и численность птиц в окрестностях этого тока существенно снижается. Это общеизвестный факт.
Структура микропопуляций средиземноморской черепахи также делает этот вид уязвимым вследствие различных антропогенных воздействий, нарушающих ключевые местообитания этих животных. Вероятно, это главная проблема сохранения средиземноморской черепахи как исчезающего вида при прокладке различных наземных коммуникаций (трасс трубопроводов, дорог и других искусственных преград).
Если не рассматривать описанную популяционную структуру вида, то сама прокладка нефтетрубопровода вряд ли может непосредственно принести прямой существенный вред средиземноморской черепахе.
Однако трасса нефтепровода с охранными полосами по обе стороны от нее (общая ширина которых составляет порядка 40 м) представляет собой пространство совершенно голой земли, пересекающее западную часть Главного кавказского хребта. В то же время, средний показатель дальности перемещения черепахи составляет лишь 32 м/сутки. Кроме того, наблюдения свидетельствуют о том, что эти рептилии избегаютдаже непродолжительное время оставаться на открытых пространствах. В нариод активности они перемещаются под защитой скрывающих их густых кустарников, либо высокой травы, и часто закапываются в землю или прячутся под густые приземистые ветви, а нередко - среди корней держидерева, можжевельника и другой растительности. В следствии выше сказанного можно заключить, что трасса нефтепровода в совокупности с охранными полосами представляет собой труднопреодолимое препятствие для черепах.
С прокладкой и функционированием трубопровода связанны различные аотропогенные факторы. Например, загрязнение; фактор беспокойства от людей и транспорта; сокращение площади кормовых местообитаний; строительство наземных сооружений трубопровода; возникновение садово-дачных участков из-за улучшения доступности территории; взрывные работы; запыление территории и растительности; разрыв естественных участков обитания микропопуляций; нарушение исторически сложившихся путей сезонных миграций и т.п. Все это может способствовать уничтожению ключевых место обитания микропопуляций черепах, разделению их на части, преобразованию настолько, что данные территории не смогут соответствовать условиям обитания вида. Тем самым будет нанесен непоправимый ущерб микропопуляциям черепахи, что может привести к исчезновению некоторых из них.