Перейти к содержимому

Адаптивные реакции крови средиземноморской черепахи Никольского Testudo graeca nikolskii Ckhikvadze et Tuniyev, 1986 (Testudinidae, Reptilia)

ВВЕДЕНИЕ

Видовой ареал средиземноморской черепа­хи - Testudo graeca Linnaeus, 1758 - расположен в Северной Африке, Южной Европе, Передней Азии и на островах Средиземного моря; зарегистриро­ванные на Канарских островах экземпляры, ско­рее всего, являются сбежавшими домашними жи­вотными, которые не образуют жизнеспособных популяций (The Reptile Database, 2024). В Краснодарском крае России, откуда добыты исследован­ные нами особи, распространена одна подвидовая форма - средиземноморская черепаха Никольско­го T. g. nikolskii Ckhikvadze et Tuniyev, 1986. Подвид описан В.М. Чхиквадзе и Б.С.Туниевым (1986) по экземплярам из Краснодарского края (голо­тип- самка из пос. Небуг Туапсинского района, паратипы - 5 экземпляров из различных пунктов юга Краснодарского края). Еще в конце XX в. средиземноморская черепаха Никольского была до вольно многочисленной между Новороссийском и Адлером в Краснодарском крае, но к настоящему времени почти исчезла здесь, поскольку ежегодно сотнями вывозилась отдыхающими. В настоящее время T. g. nikolskii - реликтовый эндемичный подвид с прогрессирующим сокращением численности, включенный в Красную книгу Российской

Федерации (2021) с категорией и статусом 1 - «На­ходящийся под угрозой исчезновения подвид» и Красную книгу Краснодарского края (2017) с категорией таксона 2ИС-«Исчезающие».

C целью сохранения средиземноморских че­репах создаются специализированные питомники (Kirsche, 1998), где черепахи содержатся под кон­тролем и охраной специалистов для последующей реинтродукции в естественные места обитания ви­да. В пос. Супсех, расположенном в 2 км на юго-восток от центра г.Анапа, находится питомник для содержания средиземноморских черепах Николь­ского, доставленных сюда из окрестностей г. Ана­пы. В рамках проверки здоровья у самцов и самок T.g. nikolskii из этого питомника были взяты мазки крови, являющиеся первичным инструментом для цитологической диагностики.

Цель работы: исследование периферической крови здоровых и зараженных гемопаразитами особей средиземноморской черепахи Никольского.

МАТЕРИАЛ И МЕТОДЫ

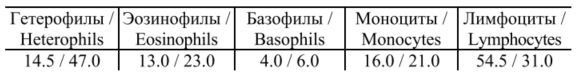
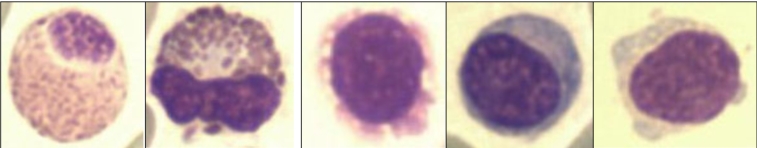
Исследованные особи T. g. nikolskii (6 сам­цов и 16 самок) содержались в питомнике и пос­тупили сюда в 2023 - 2024 гг. Забор крови у чере­пах проведен в один день (19.04.2024 г.) путем про­кола яремной вены. Все работы осуществлялись в соответствии с «Международными руководящи­ми принципами для биомедицинских исследова­ний на животных» (International Guiding..., 2012). Мазки крови (по два от каждой особи) готовились помощью гематологического штапеля, высушива­ли на воздухе, затем фиксировали в спирто-эфирной смеси (1:1). Зафиксированные мазки хранили до окрашивания при комнатной температуре. Маз­ки окрашивали в течение 20 мин красителем Гимза азур-эозин по Романовскому (10 - 12 крат­ный раствор, фирма «Биолот», Россия), приготов­ленном на фосфатном буфере (рН 6.8 - 7.2). Гото­вые мазки просматривали на микроскопе Meiji Techno серии МТ 4000 с иммерсией (Meiji Techno, Japan), при увеличении ><1500, с дифференциро­ванным подсчётом лейкоцитов (Соколина и др., 1997; Alleman et al., 1992). С учетом морфологи­ческих особенностей определяли пять типов лей­коцитарных клеток (в %): гранулоциты (гетерофилы, базофилы, эозинофилы) и агранулоциты (моноциты, лимфоциты) (рис.1).

Рис. 1. Лейкоцитарный состав крови Testudo graeca nikolskii

Цифровые изображения препаратов выпол­няли камерой Vision САМ (Vision, Japan) для тринокулярного микроскопа Meiju Techno (увеличение < 1500).

На основании лейкоцитарной формулы кро­ви рассчитали интегральные лейкоцитарные ин­дексы в относительных единицах:

индекс сдвига лейкоцитов, ИСЛ = £ грану­лоцитов / £ агранулоцитов;

индекс соотношения лимфоцитов и эозинофилов, ИСЛЭ=Л/Э;

индекс соотношения гетерофилов и эозинофилов, ИСГЭ=Г/Э;

лимфоцитарно-гранулоцитарный индекс, ИЛГ= ЛЛ0/Э+Г+Б;

индекс соотношения гетерофилов и лимфо­цитов, ИСГЛ= Г/Л, где Л - лимфоциты; Э - эозинофилы; Г - гетеро- филы; Б-базофилы.

Измеряли длину карапакса (в мм) черепах по его прямой средней линии от переднего края загривкового щитка до заднего конца надхвостового щитка штангенциркулем.

Учет гемопаразитов проводили на 500 эри­троцитов у каждой особи. Экстенсивность инва­зии (Е) - количество особей вида, зараженных ге­мопаразитами, по отношению ко всему числу исс­ледованных особей, рассчитывали по формуле: Е = n / N < 1 00%. Среднюю интенсивность инвазии (I) - число паразитов, приходящихся в среднем на одну черепаху, рассчитывали по формуле: I = m/n. Индекс обилия (ИО)- число гемопаразитов, при­ходящихся на одну исследованную особь (рассчи­тывали по формуле: ИО = m /N, где n - число зара­женных особей, m - число обнаруженных гемопа­разитов, N- число исследованных особей хозяев).

Полученные первичные данные проверяли на нормальность распределения по специальным критериям Шапиро - Уилка и Лиллиефорса. Вви­ду несоответствия первичных данных нормаль­ному распределению центральные тенденции и рассеяние показателей описывали медианой (Me) и интерквартильным размахом (IQR). Данные срав­нивали методами непараметрической статистики с расчетом критериев: Краскела - Уолли­са (H) (при множественном сравнении независимых групп по одному призна­ку), Данна (D) (множественный крите­рий при попарном сравнении групп), Манна - Уитни (u) при сравнении двух групп, критерием z - при сравнении до­лей с поправкой Холма, при а = 0.007. Анализ связи и зависимости признаков проводили ранговым коэффициентом корреляции Спирмена (р) и коэффициентом регрессии в пакете прикладных программ «Statistica» (StatSoft Inc., OK, USA). За величину статистической значимости принимали а = 0.05.

РЕЗУЛЬТАТЫ

В мазках крови средиземноморских черепах у 54.5% особей (10 самок и 2 самца) были обнаружены внутриэритроцитарные паразиты Haemogregarina spp., которые являются наиболее распро­страненными паразитами крови черепах (Adl et al., 2012), имеют сложный жизненный цикл, включа­ющий мерогонию и образование гематоцитов в эритроцитах позвоночного хозяина, а также гамо­гоний и спорогоний в кишечнике беспозвоночного переносчика (пиявки) (Siddall, Desser, 2001; Telford, 2008). Остальные особи (4 самца и 6 самок, 45.5% от собранных особей) оказались здоровыми. Экстен­сивность инвазии, средняя интенсивность инвазии, индекс обилия, а также доля зараженных клеток у самок была значимо выше по сравнению с самца­ми (z = 1.85, р = 0.032) (табл. 1), что позволяет прий­ти к заключению о том, что самки более склонны к инфицированию гемогрегаринами, чем самцы.

У исследованных инфицированных особей наблюдали разные стадии развития апикомплексовых гемопаразитов, расположенных внутри эритроцитов периферической крови: гаметоциты и трофозоиты (рис. 2). Гаметоциты имели овальную форму с зернистым ядром (см. рис. 2, а). Зрелые трофозоиты были (Т-образной формы, с частично сросшимися ответвлениями разного размера, образующими большое овальное тело, заключенное в капсулу, и ядром (см.рис.2, б).
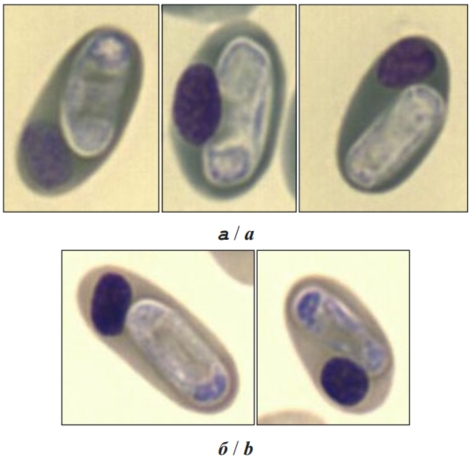
Рис. 2. Паразитические стадии Haemogregarina spp. в эритроцитах Testudo graeca nikolskii: а - гаметоциты, б - трофозоиты

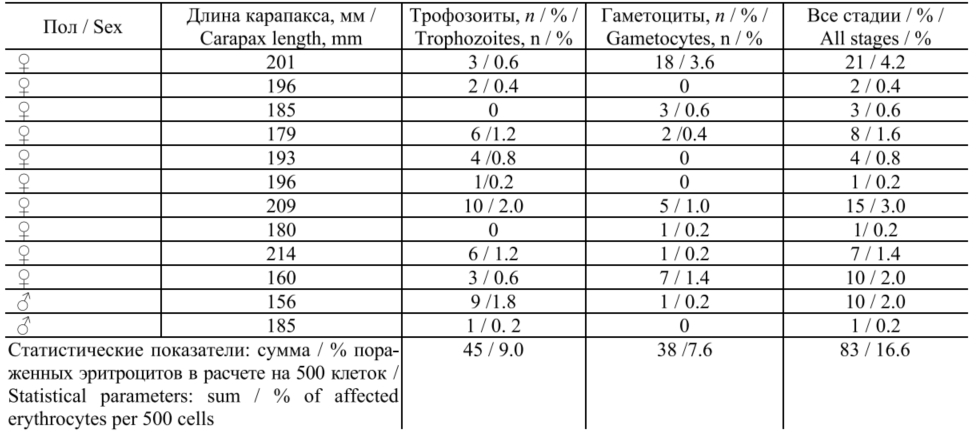
Интенсивность инфицирования черепах варьировала от 0.2 до 4.2% (процент зараженных эритроцитов) (табл. 2). В образцах крови трофозоиты встречались в 54.2% случаев заражения, достаточно часто встречались и гаметоциты (45.7%). В литературе есть сведения, что чем меньше времени прошло с момента заражения черепах, тем выше процент трофозоитов, меньше число гаметоцитных форм и инфицированных эритроцитов (Mihalca et al., 2002). Нашим исследованием установ­лено, что при высокой интенсивности инфициро­вания гаметоциты (р = 0.77, p = 0.003) и трофозои­ты (р= 0.74, p= 0.005) в эритроцитах черепах встречались с равной вероятностью.

Следует отметить отсутствие корреляцион­ной связи между длиной карапакса и паразитар­ными формами (р= 0.07, p= 0.82), хотя в литера­туре встречаются сведения о повышенном содер­жании трофозоитов в крови крупных инфициро­ванных черепах по сравнению с мелкими особя­ми и преобладании гаметоцитов у мелких чере­пах (Mihalca et al., 2002).

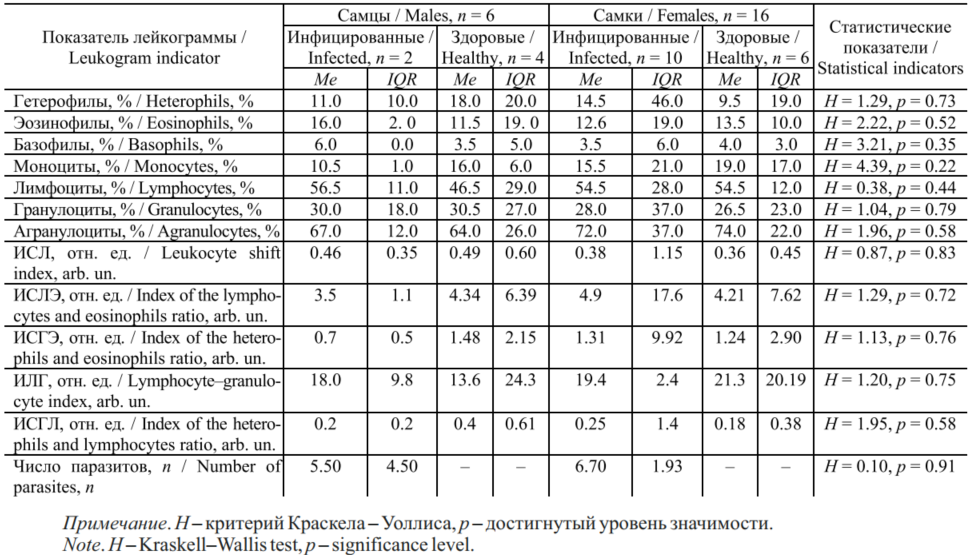
По лейкоцитарному составу крови и лейко­цитарным индексам (лимфоцитарно-гранулоцитарного, сдвига лейкоцитов, отношения лимфоцитов и эозинофилов, отношения гетерофилов и эози­нофилов, отношения гетерофилов и лимфоцитов) различий между инфицированными и здоровыми самками и самцами не выявлено. Относительное содержание гранулоцитов и агранулоцитов в четырех группах было сопоставимо (табл.3).

Усредненные значения показателей лейкограммы для здоровых и инфицированных самцов и самок характеризовались лимфоцитарным профилем, что свидетельствовало о преобладании спе­цифической (лимфоцит-зависимой) составляющей в иммунных реакциях особей (табл.4).
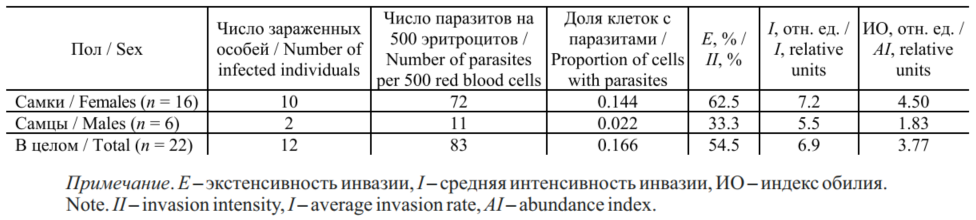
Таблица 1. Зараженность Testudo graeca nikolskii гемогрегаринами Haemogregarina spp.

Таблица 2. Пол, размеры и разные стадии гемопаразитов в эритроцитах крови Testudo graeca nikolskii (в расчете на 500 клеток)

Таблица 3. Лейкоцитарный состав периферической крови здоровых и зараженных гемогрегаринами особей Testudo graeca nikolskii

Таблица 4. Усредненные показатели (Me / IQR) лейкоцитарного сос­тава крови Testudo graeca nikolskii

Регрессионным анализом выявлена зависимость возрастания доли эозинофилов в периферической крови с содержанием в эритроцитах тро­фозоитов (рис. 3), но не гаметоцитных форм гемо­паразита. Уравнение регрессии, аппроксимирующее линейную зависимость между изученными показателями, имело вид: Эозинофилы, % = 8.8484 + 0.996 х (r = 0.614, p = 0.033, R2 =0.377). Результаты множественной регрессии свидетельствовали о значимости отличий от нуля коэффициента линей- ной регрессии, в = 0.37, и стандартной ошибки, Se = 0.15, p = 0.03.

Полученные результаты показывают, что па­разитические формы Haemogregarina spp. могут оказывать влияние на лейкоцитарный состав крови и иммунный ответ средиземноморской черепахи.

ОБСУЖДЕНИЕ РЕЗУЛЬТАТОВ

Последствия инфицирования гемогрегаринами для системы крови рептилий до конца не ясны, но есть сведения, что высокая интенсивность заражения у пресноводных черепах вызы­вает относительный лимфоцитоз и гете­ропению, при этом наличие гаметоцит- ных форм связано с возрастанием числа эозинофилов и снижением количества мо­ноцитов (Mihalca et al., 2002). Другие ис­следователи сообщают об отсутствии клинических признаков (Mihalca et al., 2008) и различий в дифференциальном количестве клеток крови у рептилий (пресноводных змей) при инфицировании (Salakij et al., 2002).

Связь между иммунитетом и паразитами достаточно сложная. Напомним, что развитию пара­зита в организме хозяина способствует такой фе­номен, как иммунологическая индукция, которая заключается в способности паразита изменять про­цесс синтеза белка с образованием общих белко­вых антигенов (Малютина, 2008). Поэтому имму­нитет при инфицировании бывает неярко выра­жен, характеризуется слабым напряжением и кратковременным действием, зависит от физиологических и экологических особенностей паразитов (Шевкопляс, Лопатин, 2008), при этом сравнитель­ный анализ крови инфицированных и здоровых особей может не показывать каких-либо различий. Известно, что гемогрегарины влияют на общее сос­тояние животных, вызывая снижение значения ге­матокрита, гемоглобина и количества эритроцитов у инфицированных особей (Thrall et al., 2004; Sta­cy et al., 201 1). При нарастании интенсивности инфекции гемогрегарины, несущие широкий спектр поверхностных антигенов, по всей видимости, распознаются хозяином как нечто генетически чужеродное, вызывая ответные иммуноло­гические реакции и эозинофилию. По своим цитохимическим свойствам эозинофильные гранулоциты являются первичными эффек­торными клетками со специфической анти-паразитарной функцией, и возрастание в крови доли этих клеток при инфицировании обеспечивает усиление защитных реакций организма (Шевкопляс, Лопатин, 2008).
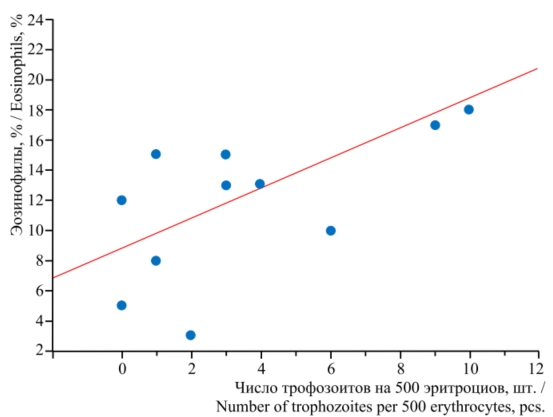
Рис. 3. Зависимость возрастания количества эозинофилов в крови, инфицированных spp. Testudo graeca nikolskii Haemogregarin

ЗАКЛЮЧЕНИЕ

Наше исследование является первым, в котором проведена оценка адаптивных ре­акций системы крови здоровых и заражен­ных гемопаразитами средиземноморских че­репах. Полученные результаты предоставили доказательства влияния интенсивности инфицирования гемопаразитами на иммун­ный статус черепах. Черепахи как долгожи­вущие, морфологически и экологически консервативные виды на протяжении своей жизни, вероятно, сталкиваются с самыми разнооб­разными патогенами, что приводит к развитию более сложной (опосредованной антителами) иммунной защиты, тогда как короткоживущие виды в большей степени полагаются на неспе­цифическую и воспалительную иммунную за­щиту. Однако их низкое видовое богатство и вы­сокая степень антропогенной угрозы, а также изменения окружающей среды в пространствен­ном и временном масштабах указывают на необ­ходимость защиты и сохранения видов, подвер­гающихся серьезному риску исчезновения.

Полагаем, что выявление возможных вред­ных долгосрочных последствий инфицирования гемогрегаринами, контроль за состоянием здо­ровья и численностью T. g. nikolskii будет спо­собствовать защите и сохранению этого редкого подвида черепах в Краснодарском крае.
Список литературы

Красная книга Краснодарского края. Живот­ные. 3-е издание. 2017. Краснодар: Администрация Краснодарского края. 720 с.

Красная книга Российской Федерации. Т. Жи­вотные. 2-е издание. 2021. М. : ФГБУ «ВНИИ Эколо­гия». 1128 с.

Малютина Т. А. 2008. Взаимоотношения в си­стеме паразит-хозяин: биохимические и физиологи­ческие аспекты адаптации (ретроспективный обзор) // Российский паразитологический журнал. № 1. С. 1 - 17.

Соколина Ф. М., Павлов А. В., Юсупов Р. Х. 1997. Гематология пресмыкающихся : методическое пособие по курсу «Герпетология», большому практи­куму и спецсеминарам. Казань : Казанский государ­ственный университет. 31 с.

Чхиквадзе В. М., Туниев Б. С. 1986. О система­тическом положении современной сухопутной чере­пахи Западного Закавказья // Сообщения Академии наук Грузинской ССР. Т. 124, № 3. С. 617 - 620.

Шевкопляс В. Н., Лопатин В. Г. 2008. Влияние гельминтозов на течение иммунологических процес­сов у животных // Российский паразитологический журнал. № 4. С. 94 - 101.

Adl S. M., Simpson A. G. B., Lane C. E., Lukes J., Bass D., Bowser S. S., Brown M. W., Burki F., Dunthorn M., Hampl V., Heiss A., Hoppenrath M., Lara E., le Gall L., Lynn D. H., McManus H., Mitchell E. A. D., Mozley- Stanridge S. E., Parfrey L. W., Pawlowski J., Rueckert S., Shadwick L., Schoch C. L., Smirnov A., Spiegel F. W. 2012. The revised classification of eukaryotes // Journal of Eukaryotic Microbiology. Vol. 59, iss. 5. P. 429 - 514. https://doi.org/10.1111/j.1550-7408.2012.00644.x

Alleman A. R., Jacobson E. R., Raskin R. E. 1992. Morphologic and cytochemical characteristics of blood cells from the desert tortoise (Gopherus agassizii) // Ameri­can Journal of Veterinary Research. Vol. 53. P. 1645 - 1651.

International Guiding Principles for Biomedical Research Involving Animals. 2012. Geneva, Switzerland : Council for International Organization of Medical Sci­ences Publ. 4 p.

Kirsche W. 1998. Die Landschildkroten Europas. Biologie, Pflege, Zucht und Schutz. Melle : Mergus Ver­lag GmbH. 104 p.

Mihalca A., Achelaritei D., Popescu P. 2002. Hae­moparasites of the genus Haemogregarina in a popula­tion of European pond turtles (Emys orbicularis) from Dragasani. Valcea county, Romania // Scientia Parasito- logica. Vol. 2. P. 22 - 27.

Mihalca A., Racka K., Gherman C., Ionescu D. T. 2008. Prevalence and intensity of blood apicomplexan in­fections in reptiles from Romania // Parasitology Research. Vol. 102, iss. 5. P. 1081 - 1083. https://doi.org/10.1007/ s00436-008-0912-9

Salakij C., Salakij J., Suthunmapinunta P., Chan­home L. 2002. Hematology, mor-phology and ultrastruc­ture of blood cells and blood parasites from puff-faced watersnakes (Homalopsis buccata) // Kasetsart Journal - Natural Science. Vol. 36. Р. 35 - 43.

Siddall M. E., Desser S. S. 2001. Transmission of Haemogregarina balli from painted turtles to snapping turtles through the leech Placobdella ornata // Journal of Parasitology. Vol. 87, iss. 5. Р. 1217 - 1218. https://doi.org/ 10.1645/0022-3395(2001)087[1217:TOHBFP]2.0.CO;2

Telford Jr. S. R. 2008. Hemoparasites of the Repti­lia : Color Atlas and Text. New York : CRC Press. 376 p.

The Reptile Database / eds. P. Uetz, P. Freed, R. Aguilar, F. Reyes, J. Kudera, J. Hosek. 2024. Availa­ble at: https://www.reptile-database.org (accessed May 22, 2024).


Современная герпетология, 2024 т.24 вып.3/4

Е. Б. Романова 1, А. Г. Бакиев 2, Р. А. Горелов 2

1 Национальный исследовательский Нижегородский государственный университет
им. Н. И. Лобачевского

Россия, 603950, г. Нижний Новгород, проспект Гагарина, д. 23

2 Самарский федеральный исследовательский центр РАН,
Институт экологии Волжского бассейна РАН
Россия
, 445003, г. Тольятти, ул. Комзина, д. 10

⇓ Скачать PDF "Современная герпетология" сборник со статьями про черепах (25 мб)