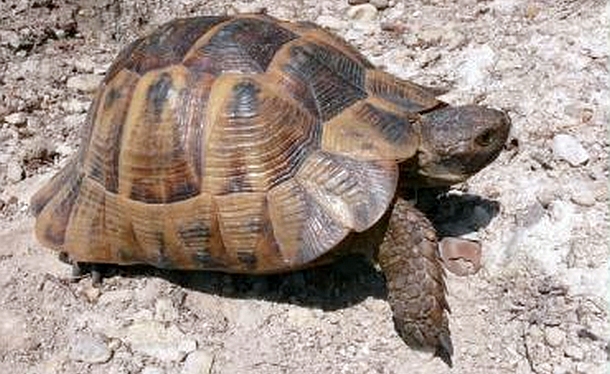
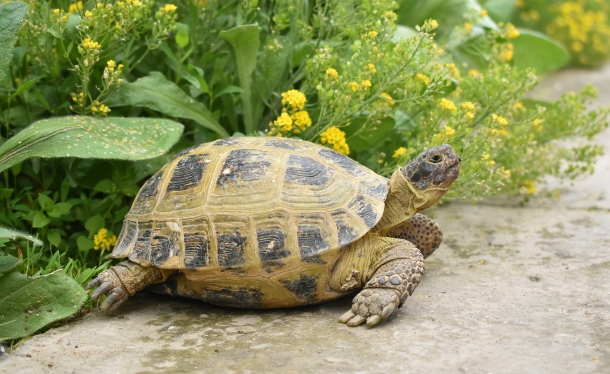
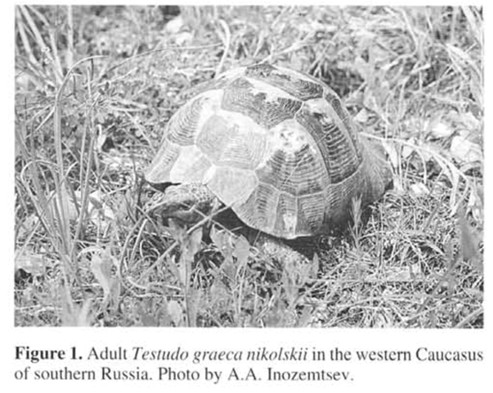
Testudo graeca nikolskii — редкий подвид средиземноморской черепахи, встречающийся в сухих субтропических лесах Кавказа на юге России (Рис. 1). Все популяции на Кавказе и в Закавказье, по-видимому, сокращаются (Определитель земноводных и пресмыкающихся фауны СССР» (А. Г. Банников и соавторы)1977; Красная книга СССР, 1984; А. А. Иноземцев и С. Л. Перешкольник, 1987; Иноземцев 1993; Иноземцев и Перешкольник, 1994). Уничтожение ювенильных черепах хищниками (Красная книга РСФСР, 1983), неконтролируемый сбор человеком как взрослых, так и молодых животных (Красная книга РСФСР, 1983; Красная книга СССР, 1984) и деградация местообитаний (Красная книга РСФСР, 1983; Даревский и Орлов, 1988) считаются основными факторами такого сокращения. Предположительно существуют и другие факторы (Иноземцев, 1991; Иноземцев и Перешкольник, 1985), и именно общая совокупность стрессовых воздействий оказывается фатальной для этих рептилий. Эта комбинация воздействий рано или поздно приводит к прогрессирующему снижению численности популяции черепах.
В этой статье представляется информация об общем распределении и обилии средиземноморской черепахи в ксерофитных лесах Западного Кавказа на юге России, полученная в ходе исследования вдоль побережья Черного моря между районом Дюрсо – озеро Абрау и Новороссийском (Рис. 2).
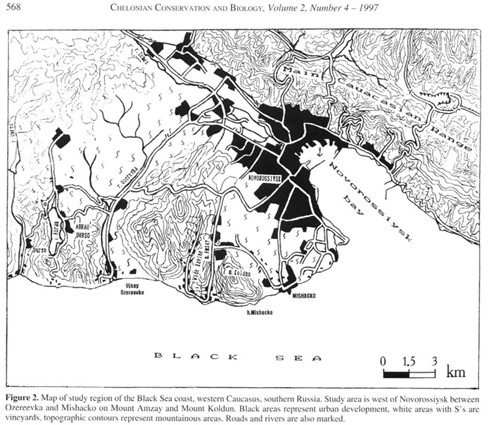
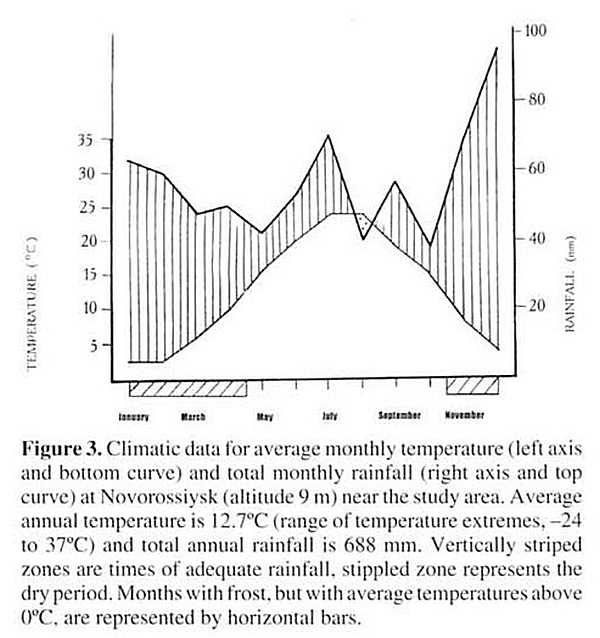
Район исследования. Ландшафт этой преимущественно горной местности, где самые высокие холмы имеют высоту от 100 до 300–400 м над уровнем моря, очень пересеченный. Склоны изрезаны многочисленными оврагами и балками; средний уклон местности по большей части не превышает 25°, но у оврагов и балок варьируется от 25 до 35°, а в некоторых случаях еще больше. Климат средиземноморского типа: лето жаркое и сухое, зима умеренная или холодная с максимумом осадков в ноябре–январе и минимумом в мае и августе (Рис. 3).
Особенностью района являются сильные, ураганоподобные холодные северные ветры (бора), которые дуют в сторону морского побережья через низкогорный перевал у Новороссийска по несколько дней подряд, в основном осенью и зимой.
Особенности физико-географических условий, геологическое прошлое Западного Кавказа, а также последовательность появления видов растений в регионе и их последующая эволюция определяют уникальность этого сухого, переходящего в субтропический, флористического комплекса. Типичные деревья и древовидные формы включают Juniperus excelsa, J. foetidissima, Pistacia mutica, Celtis glabrata, Pinus pithyusa, P. pallasiana, Arbutus andrachnae и Taxus baccata; виды подлеска включают Ruscus ponticus, Lonicera tatarica и Cistus tauricus. Там, где деревья были вырублены, обычно встречаются изолированные кусты и небольшие группы Paliurus spinachristi и Jasminum fruticans, которые часто образуют густые заросли.
Зона лесного поверхностного слоя почвы сухих субтропиков Западного Кавказа представлена двумя основными ассоциациями. Более древняя из них — фисташково-можжевеловый лес, расположенный на высоте от нескольких метров до примерно 200 метров над уровнем моря на склонах, обращенных к морю на юг и юго-запад. Основными деревьями этой ассоциации являются вышеупомянутые можжевельники и фисташка, а также Quercus petraea, Sorbus torminalis и Cotoneaster integerrima.
Вторая ассоциация — дубово-грабовый лес на высоте около 150 метров и выше, покрывающий склоны преимущественно северной и восточной экспозиций. В пологе основными деревьями являются Quercus pubescens и Q. petraea, Carpinus orientalis, Tilia caucasica, Fraxinus excelsior и Acer campestre; во втором ярусе — Carpinus orientalis; в подлеске — Sorbus graeca, Cornus mas, Viburnum tinus, Euonymus verrucosa и Hedera helix.
Как леса, так и более разреженные участки древесной растительности, расположенные на промежуточных и нижних склонах, особенно обращенных к морю, в последние десятилетия подверглись сильному антропогенному воздействию. Они подвержены различным влияниям многих форм человеческой деятельности, что часто приводит к прямому уничтожению как природных растительных сообществ, так и их обитателей-животных (Иноземцев, 1991). Аналогичные последствия ощущаются на большей части ксерофитных лесов региона, включая район наших исследований.
Методы. Основные части долгосрочного учета черепах и определения их распределения и экологии проводились на территориях, находящихся в ведении Новороссийского лесничества, расположенных между Ужаном Озереевкой и поселком Мысхако на склонах горы Колдун и горы Амзай, а также на 4 км побережья моря, простирающегося от долины «Широкой балки» до Мысхако.
Восемь постоянных исследовательских площадок (от 1 до 3 га каждая) были заложены в различных местообитаниях: 1) в грабовом лесу на юго-западных склонах горы Колдун, 2) в каменистых осыпях на юго-восточном склоне горы Амзай, 3) в разреженном можжевеловом лесу (подлежащем расчистке под пастбище) на западном склоне горы Колдун, 4) в разреженном фисташково-можжевеловом лесу на южных склонах, 5) на обширном участке соснового леса, 6) на открытой поляне среди грабово-дубового леса с отдельными группами чистого можжевельника на южном склоне горы Колдун, 7) в дубово-грабово-можжевеловом лесу на северо-западном склоне горы Амзай и 8) на полянах, покрытых жасмином и отдельными группами Paliurus, на юго-западных склонах горы Колдун. Каждый период наблюдений длился 3–5 часов, в зависимости от размера и пересеченности местности, и обычно проводился группой из 3–4 человек и собаки.
Каждый месяц обследовались 30–50 га. Пешие маршруты проводились в дубово-грабово-можжевеловом лесу на высоте 20–50 м на склонах южной экспозиции на протяжении 1,5 км; через смешанные экосистемы (например, различные виды деревьев, поляны, старые гари, каменистые осыпи) на высоте 100–150 м над уровнем моря на западных склонах (протяженность 3 км); в дубово-грабовом лесу с обильным можжевельником и обширными полянами на высоте 150–200 м над уровнем моря на склонах восточной и северо-восточной экспозиции (протяженность 2 км); и вдоль русла ручья в дубово-грабовом лесу с редким можжевельником местами в ущельях горы Колдун и горы Амзай (протяженность 2 км). Общая протяженность ежемесячных маршрутов составляла около 80 км.
Учет плотности черепах в различных местообитаниях проводился в течение нескольких лет: в 1981 г. (апрель–октябрь); 1982 г. (май, июль–сентябрь); 1983 г. (апрель–май, июль–сентябрь); 1984 г. (май–сентябрь); 1985 г. (май–июль); 1986 г. (конец мая – июль); 1987 г. (середина мая – июнь); 1989 г. (конец апреля – июнь); 1990 г. (конец мая); 1991 г. (июнь–июль, сентябрь); 1992 г. (конец апреля – май, сентябрь); и 1995 г. (конец апреля – сентябрь), с более или менее одинаковой интенсивностью усилий каждый месяц.
В ходе исследования было осмотрено и измерено примерно 1500 черепах (без учета повторных отловов), из которых около 700 были помечены. Температура тела измерялась с помощью электрического термометра, вводимого в клоаку. Также регистрировалась температура воздуха. Пол определяли у экземпляров с длиной карапакса более 150 мм на основе признаков, описанных Ламбертом ( Ламберт, 1982).
Результаты и обсуждение. — Черепахи следовали сезонным предпочтениям в выборе местообитания. Весной наивысшая плотность была обнаружена в открытых местообитаниях, таких как поляны, луга и разреженные лесные массивы (Рис. 4). В апреле 1981 г. средняя плотность популяции черепах на поляне составляла 5,6 особи/га. В лесу с сомкнутым пологом весной было трудно найти каких-либо черепах; они были сконцентрированы на полянах, лугах и в разреженных лесах. Общая плотность популяции составляла 0,2–0,3 особи/га в 1981–82 гг., 0,2 в 1983–85 гг. и 0,1 в 1986–87 гг. Поскольку учеты обычно проводились весной (в сезон размножения, когда взрослые особи были половозрелы и легко наблюдаемы), приведенные цифры в основном отражают плотность половозрелых особей.
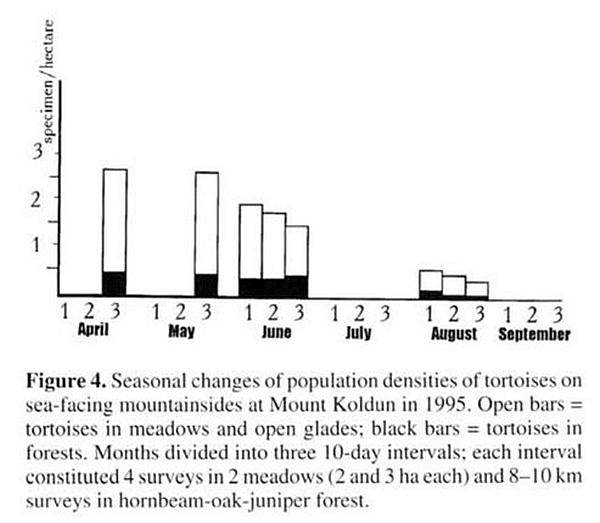
Позже в течение года, по мере изменения доступного корма (включая снижение питательной ценности одуванчиков, Taraxacum sp., растущих на открытых участках, а также клевера, Trifolium sp., и других кормовых растений), плотность черепах на полянах и в открытых можжевеловых лесах снижалась, поскольку значительное количество черепах мигрировало в прилегающие лесные местообитания. Вероятно, одним из основных факторов, вызвавших такую миграцию, является температура, которая становилась чрезмерной в дневные часы на открытых, освещенных солнцем местах.
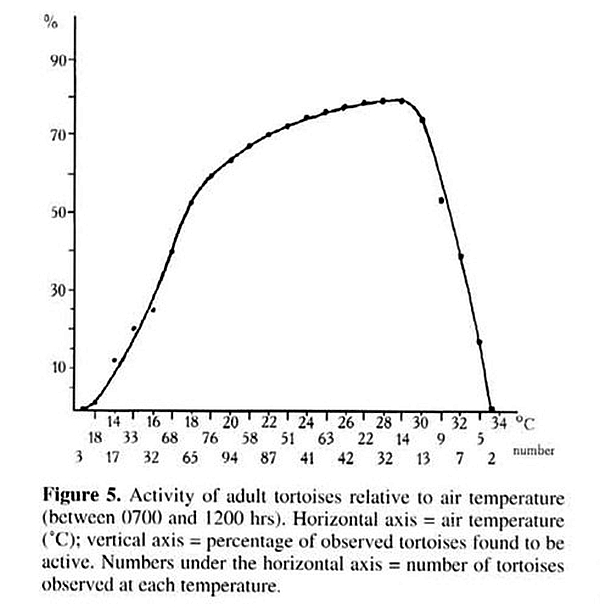
Черепахи были активны в довольно широком диапазоне температур воздуха, от 15 до 31 °C . Выше или ниже этого диапазона активность резко снижалась. Черепахи становились неактивными при глубокой температуре тела 10 °C или если она повышалась до 31–32 °C (особенно когда температура воздуха превышала 30 °C , и тогда черепах больше не было видно на открытых солнечных местах, таких как поляны и обширные каменистые осыпи. Летом глубокая температура тела активных черепах варьировалась от 26 до 33 °C . Когда температура воздуха была между 18 и 33 °C, 20% черепах с клоакальной температурой 25 °C были активны, 30% при 26 °C , около 40% при 27 °C, 50% при 28 °C , 60% при 32 °C и 35% при 33 °C (n = 98, все взрослые особи; Рис. 5).
Другими факторами, влиявшими на активность или ограничивавшими ее, были длительные холодные северные ветры (бора), сильные дожди и резкие похолодания. Например, когда начинала дуть бора и температура резко падала (летом примерно на 8–10 °C), черепахи не покидали свои убежища. Но когда эпизод боры заканчивался и восстанавливалась нормальная погода, черепахи покидали свои убежища и паслись в первый же теплый и безветренный день. В такие периоды они концентрировались на полянах. В холодные ранние часы 12 сентября 1982 г., во время эпизода боры, тщательный осмотр поляны (2 га) шестью людьми позволил обнаружить только одну черепаху, хорошо закопавшуюся под кустами. Но 18 сентября 1982 г., после того как ветер стих и температура к 10:00 утра составила 21 °C, на той же поляне было найдено 6 активных черепах.
В определенной степени тип суточной активности зависел от мест обитания. На открытых местах, таких как поляны, максимальная активность черепах приходилась на утренние и вечерние часы и прекращалась во второй половине дня; но в лесах, где наблюдались меньшие перепады температуры приповерхностного слоя воздуха и не было прямых солнечных лучей, режимы активности были более постоянными (Рис. 6). Тем не менее, из-за того, что черепахи ксерофитных лесов Западного Кавказа имеют периоды суточной активности (Inozemtsev and Pereshkolnik, 1994), и суточный период активности отдельной взрослой особи не превышает 10 часов, утренние регистрации (с 6:00 до 11:00) превышали послеполуденные регистрации (с 14:00 до 18:00) примерно на 20%. Чтобы поддерживать температуру тела на оптимальном уровне, черепахи перемещаются между открытыми и затененными участками (Lambert, 1982, 1984; Inozemtsev, 1983; Inozemtsev and Pereshkolnik, 1994), и они проводят значительную часть своего времени бодрствования в поведенческой терморегуляции (Lambert, 1981; Meek and Jayes, 1982). Большой процент черепах, обитающих в Западном Кавказе, к июню мигрирует из жарких открытых полян и лугов в более прохладные леса.
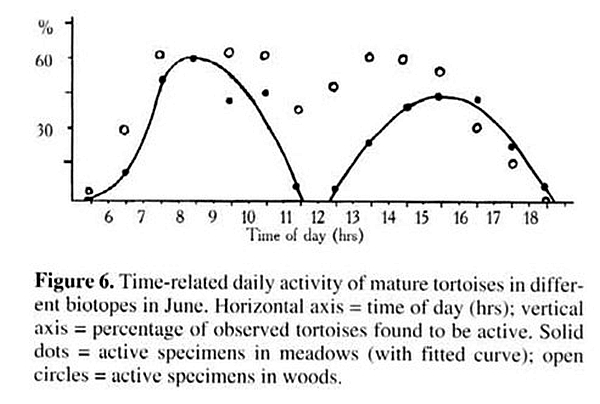
Это относительное увеличение популяции черепах в лесах необходимо интерпретировать осторожно: расселение на лесной территории, значительно превышающей по площади открытые поляны и луга их ранневесенней концентрации, увеличило плотность популяции в лесных районах лишь незначительно (Рис. 4).
В самые жаркие летние дни (обычно с середины июля до середины августа) черепахи иногда концентрировались вблизи лесных ручьев и редких постоянных озер и прудов в лесах. Наблюдалось, как черепахи пьют в таких местах (Левинсон, 1977; Иноземцев и Перешкольник, 1994).
К осени черепахи рассеивались по лесам в поисках мест зимовки. Начиная с сентября, количество взрослых черепах на полянах быстро уменьшалось (в конце сентября они редко встречались, за исключением сеголеток). Осенью концентрация черепах в различных местообитаниях становилась почти равномерной.
Модели сезонного перераспределения плотности популяции различались для разных возрастных групп черепах. Половозрелые черепахи в период ранневесеннего спаривания скапливались на открытых участках (например, на полянах, лугах, каменистых склонах), которые представляли благоприятные условия для спаривания и типы почв, облегчающие рытье гнезд и откладку яиц. На полянах были найдены как правильно закопанные яйца, так и отдельные незакопанные яйца. В то же время значительное количество взрослых черепах можно было найти в прилегающем лесу. Половозрелые черепахи, вероятно, активно перемещались между открытыми местообитаниями и полянами в ближайшие леса, которые, вероятно, обеспечивали лучшие условия для укрытия в периоды пониженной активности. Миграция самцов и самок взрослых черепах следовала разным моделям. Во время спаривания более активные самцы часто наблюдались на полянах, хотя некоторые из них позже покидали эти участки. Самки, ищущие места для рытья гнезд и откладки яиц, проводили больше времени на полянах. Соответственно, наблюдаемое соотношение полов (самки:самцы) на полянах составляло 1:1,1 в апреле; 1:1,3 в мае; 1:0,8 в июне; 1:0,9 в июле и примерно 1:1 позже в течение года.
Летом, когда трава выгорает, неполовозрелые черепахи встречались на открытых участках. Их обилие увеличивалось к концу лета, в то время как количество взрослых черепах уменьшалось. В течение первого года жизни ювенильные черепахи оставались вблизи места своего рождения, совершая короткие перемещения только под прикрытием густой травы и плотного низкорослого жасмина (Рис. 7).
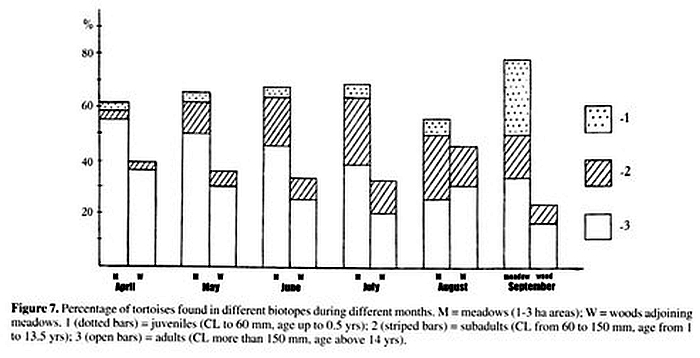
Вышеупомянутые сезонные предпочтения среды обитания для черепах следует корректировать с учетом дифференциальных моделей суточной активности различных возрастных групп, которые влияли на вероятность их обнаружения. Фактически, продолжительность суточной активности взрослых черепах прогрессивно уменьшалась по мере приближения жаркой погоды (июль–август, когда трава на открытых участках обычно выгорает), но она существенно не менялась у субадультных животных. У ювенильных особей наблюдаемая продолжительность активности в определенной степени увеличивалась с возрастом. Значительное увеличение обилия ювенильных особей на полянах, обычно в середине–конце сентября, было результатом почти синхронного появления вылупившихся детенышей.
Общая численность черепах в районе исследований прогрессивно уменьшалась в течение всего периода наблюдений, т.е. с 1973 г. (Иноземцев, 1993; Иноземцев и Перешкольник, 1994). Однако снижение, вероятно, началось даже раньше, скорее всего, около середины века. Экосистема ранее могла компенсировать стресс, и ксерофитные леса оставались почти неизменными до 1940-х годов, защищенные своей пересеченной местностью с крутыми склонами, густыми субтропическими лесами и отсутствием подъездных дорог. Таким образом, до недавнего времени существовала хорошая естественная защита мест обитаний на обращенных к морю горных склонах (особенно южных склонах горы Колдун и горы Амзай, где проводились наши наблюдения).
Лесные склоны и побережье моря к западу от Новороссийска подверглись серьезной деградации и изменению в начале 1970-х годов, когда была построена автомобильная дорога для обеспечения доступа к различным рекреационным объектам. Как густые, так и открытые ксерофитные леса на склонах пострадали и сократились в результате последовавшего за этим быстрого освоения. Земля использовалась под туристические и рекреационные центры, спортивные площадки и дороги. В то же время там были посажены экзотические деревья и другая растительность, включая лиственницу (Larix decidua), тополь (Populus bolleana), орех (Juglans regia) и Aesculus hippocastanum. Фисташковые деревья, можжевельники и другие аборигенные деревья исчезают. Количество людей, посещающих этот район или проживающих в летних лагерях, увеличилось наряду с ростом общего освоения территории. Соответственно возросло влияние антропогенных факторов на экосистему района.
Этот процесс носил дискретный, эпизодический характер, и количественные изменения в окружающей среде накапливались постепенно. После завершения строительства дорог и рекреационных центров, за чем последовали движение транспорта, туристические посещения и дальнейшее строительство, произошел резкий рост антропогенной трансформации всей экосистемы. Могут быть выделены следующие антропогенные стадии этого процесса развития:
- Освоение девственной природы для кратковременного отдыха на открытом воздухе (ок. 1950–70 гг.);
- Строительство небольших летних лагерей и развитие сельских курортных зон (ок. 1970–74 гг.);
- Строительство крупных зданий и дальнейшее освоение неосвоенной территории (ок. 1975–79 гг.);
- Замена старых, небольших деревянных зданий более крупными, многоэтажными каменными зданиями и создание курортной зоны (ок. 1980–85 гг.);
- Относительная стабилизация уровней рекреационной и промышленной/строительной активности (ок. 1986–90 гг.);
- Снижение активности развития: уменьшение рекреационного воздействия на доступные части ландшафта (ок. 1991–95 гг.).
Такое поэтапное строительство (и освоение), при котором старые здания заменялись новыми и более постоянными в течение 3–6 лет, а последние, в свою очередь, также вскоре заменялись — все эти факторы вызвали непрерывное увеличение антропогенного воздействия на экосистему, препятствуя естественному регулированию экологических сил, которые стабилизируют природу. Экосистема ксерофитных лесов неуклонно и быстро ухудшалась в результате этого. Леса исчезли с горных склонов (вплоть до самых вершин), и на ранее облесенных участках посажены виноградники.
Из-за этих негативных воздействий на экосистему численность черепах в районе исследований начала быстро сокращаться. В 1973–75 гг. средняя плотность популяции черепах в ксерофитных лесах составляла 0,3 особи/га, в 1981–82 гг. — около 0,2, а в 1986–87 гг. — менее 0,1.
Однако наряду с уничтожением или забрасыванием виноградников в 1987–89 гг. во время антиалкогольной кампании Горбачева, снижение популяции черепах, возможно, стало менее острым. В сочетании с пяти-десятикратным сокращением числа туристов (вызванным значительным повышением цен на проживание и транспорт) и сопутствующим уменьшением общей местной экономической активности в летние месяцы, плотность популяции черепах могла стабилизироваться в 1991–92 гг. (Рис. 8).
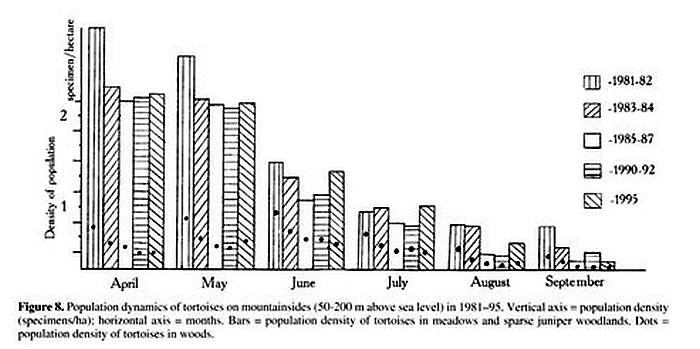
Черепахи практически исчезли в лесах, прилегающих к курортным зонам (построенным к 1985 г.), прилегающих к новой автомагистрали (где они интенсивно эксплуатируются с 1980-х годов), и вблизи береговой линии (где летом все еще находится большое количество туристов). Черепахи также покинули лесные луга, на которых обычно пасется скот, а также места с деградацией мест обитаний из-за рекреационного освоения. Черепахи редки в лесах между Геленджиком и Дивноморском, где в последнее время ведется курортное строительство; их практически нет в лесах, граничащих с озером Абрау на юго-востоке.
Таким образом, несмотря на стабилизацию плотности популяции черепах в ксерофитных лесах и положительные тенденции в среднем размере черепах на Кавказском побережье (личн. наблюд.), доступная среда обитания сокращается, и число черепах также уменьшается.
Дополнительную озабоченность вызывают планы строительства крупного межгосударственного нефтепровода, проходящего из Закаспийского региона на северо-востоке к морскому терминалу в 12 км к западу от Новороссийска. Завершение этого проекта пересекло бы территорию, населенную средиземноморской черепахой к западу от Кавказа, разрушило бы часть ее доступной среды обитания и затруднило бы поддержание стабильной популяции черепах в этом быстро развивающемся регионе.
Благодарности. Полевые работы, проведенные в апреле, мае и июне 1995 г., были финансированы Обществом охраны дикой природы (Wildlife Conservation Society), а полевые работы в августе и сентябре 1995 г. были профинансированы В.Е. Кузьминой. Я очень ценю их поддержку. Я также благодарен С.Л. Перешкольнику (Московский зоопарк), который предоставил некоторые данные о распределении и численности черепах и систематизировал данные в 1995 г., а также сотрудникам кафедры биологии и экологии Московского педагогического университета за помощь в завершении этой работы. Я также благодарю всех, кто участвовал в сборе этих материалов, включая моих учеников, других студентов и коллег. Отчет включает информацию, собранную студентами Тверского университета во время их подготовки к дипломным работам по зоологии (в июне 1983 г., апреле и июне 1984 г., апреле и сентябре 1985 г., апреле и июле–сентябре 1986 г., а также апреле и июле 1987 г.). Работа также включает данные по популяции и экологии черепах, собранные Г.И. Френкиной из Московского педагогического университета, которая принимала участие в этой работе с самого начала, но, к сожалению, безвременно скончалась в 1991 г.
BANNIKOV, A.G.; DAREVSKY, I.S.; ISCHENKO, V.G.; RUSTAMOV, A.K.; AND CHERBAK, N.N. 1977. [Identification of the amphibian and reptilian fauna of the Soviet Union]. Moscow: Prosveshchenie, 414 pp.
DAREVSKY, I.S., AND ORLOV, N.I. 1988. [Rare and disappearing animals: amphibians and reptiles.] Moscow: Vysshaya Shcola, 463 pp.
INOZEMTSEV, A.A. 1983. [Mediterranean tortoise.] Biologia Shkole 1983(3):76-78.
INOZEMTSEV, A.A. 1991. [Modern dynamics of the anthropological transformation of the xerophyte forest ecosystems of Northern Caucasus adjacent to the Black Sea.] In: Study, use and protection of the fauna of Russia's European part. Moscow: Moscow Pedagogical Institute, pp. 41-83.
INOZEMTSEV, A.A. 1993. [To preserve the unique forests of Northern Caucasus.] Priroda 1993(7):41-53.
INOZEMTSEV, A.A., AND PERESHKOLNIK, S.L. 1985. [Present status and conservation prospects for Testudo graeca L. inhabiting the Black Sea coast of the Caucasus.] In: Inozemtsev, A.A., Zinovev, V.I., Viktorov, L.V., Sorokin, M.G., Tikhomirova, V.A., and Tomashevskij, K.E. (Eds.). [The Influence of Anthropogenic Factors on the Structure and Functioning of Biogeocoenoses.] Kalinin: Ministry of Higher Education, pp. 60-79.
INOZEMTSEV, A.A., AND PERESHKOLNIK, S.L. 1987. [To preserve a fragment of the ancient Pontida.] Priroda 1987(8):38-49.
INOZEMTSEV, A.A., AND PERESHKOLNIK, S.L. 1994. Status and conservation prospects of Testudo graeca L. inhabiting the Black Sea coast of the Caucasus. Chelonian Conservation and Biology 1(2):151-158.
LAMBERT, M.R.K. 1981. Temperature, activity and field sighting in the Mediterranean spur-thighed or common garden tortoise Testudo graeca L. Biol. Conserv. 21:39-54.
LAMBERT, M.R.K. 1982. Studies on the growth, structure and abundance of the Mediterranean spur-thighed tortoise Testudo graeca in field populations. J. Zool., London 196:165-189.
LEVINSON, S.V. 1977. [On the biology of reproduction of the Greek tortoise in Southern Dagestan.] In: Voprosy gerpetologii. Leningrad, pp. 131-132.
MEEK, R., AND JAYES, A.S. 1982. Body temperature and activity patterns of Testudo graeca in Northwest Africa. Brit. J. Herp. 6(6):194-197.
RED BOOK OF THE RSFSR. 1983. [Animals.] Moscow: Rosselkhozizdat, 454 pp.
RED BOOK OF THE USSR. 1984. [Rare and disappearing kinds of animals and plants. Volume 1.] Moscow: Lesnaya Promyshlennost, 392 pp.