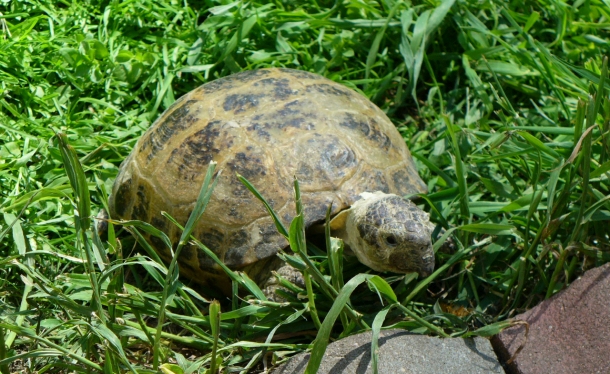
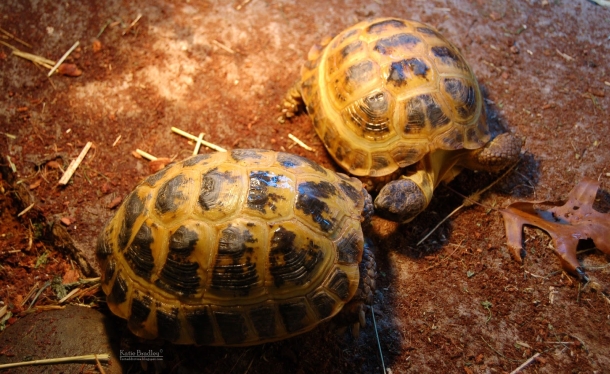
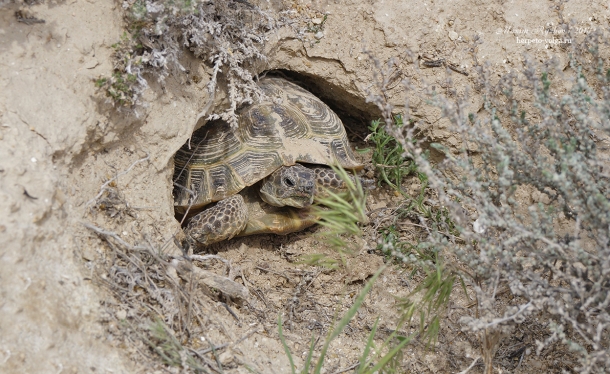
На протяжении многих лет в Казахстане для внутренних нужд страны и удовлетворения потребностей зарубежных фирм отлавливают 120—130 тыс. черепах в год. Масштабы и сроки заготовок определяют на основании учета численности и исследований экологических особенностей черепахи в различных частях ареала, в частности репродуктивного цикла. Однако этот вопрос в местах промысла изучен недостаточно хорошо. Некоторые особенности размножения черепахи исследовались двадцать лет назад К. П. Параскивом (1956) в Муюнкумах, Кызылкумах и Южном Прибалхашье. Автор приводит сроки спаривания и откладывания яиц в этих районах, отдельные сведения о размерах молодых особей и соотношении их полов. На основе материалов, собранных в Южном Прибалхашье, предполагается, что массовое откладывание яиц происходит с конца апреля по июнь не менее трех раз в сезон.
В данной статье приведены материалы трехлетних исследований состояния половых желез самок, плодовитости особей разного размера, сроков спаривания и откладывания яиц, величины яиц и молодых особей, депонирования питательных веществ в связи с процессом оогенеза. Материал собран в Алма-Атинской области преимущественно в окрестностях пос. Чингельды и по правому берегу р. Или у южных склонов хр. Малайсары с 9 апреля по 8 июня 1975 г., с 12 апреля по 4 мая 1976 г. и с 24 апреля по 9 июня 1977 г. Места обитания здесь черепах представляют собой глинистую пустыню с эфемерно-солянково-терескеновой растительностью.
У самок определяли возраст, длину и массу тела. Вскрыто 92 особи в возрасте 8—23 лет. При обследовании половозрелых особей учитывали число яиц в яйцеводах, число и величину фолликулов разных генераций и состояние желтых тел. Промерено 66 яиц, взвешена печень у 59 самок, измерены 44 перезимовавшие молодые особи. У 29 самок из разных отделов яйцевода взяты мазки.
Установлено, что самки среднеазиатской черепахи начинают размножаться в возрасте 13—14 лет (длина 134 —140 мм, масса 560 — 900 г), но среди особей в возрасте 15 лет встречаются к неполовозрелые [1].
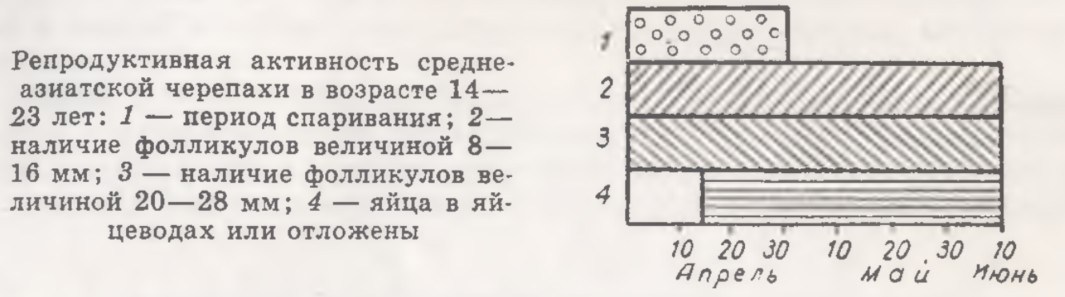
Спаривание черепах начинается сразу после выхода их из зимних убежищ — с первых чисел апреля. Массовое спаривание отмечено несколько дней спустя и продолжается до конца этого месяца (см. рисунок). К. П. Параскыв (1953) наблюдал его в Южном Прибалхашье несколько позже — с 20 апреля до середины мая, в конце мая и в первой половине июня оно встречалось редко.
Нам не приходилось наблюдать спаривания в первой декаде мая. Половая активность самцов в конце апреля и в начале мая резко снижается. Они перестают преследовать самок и кормятся вдали от них. Пары встречаются редко, хотя гонады самок содержат зрелые ооциты второй генерации. На пеших маршрутах с 29 апреля по 8 июня среди 480 просчитанных черепах зарегистрировано всего девять пар (1,8 %).
В настоящее время вопрос о повторности спаривания у степной черепахи окончательно не решен. Большинство исследователей считает, что оно осуществляется перед каждой кладкой [2—5]. По мнению А. М. Сергеева [6], самки спариваются лишь однажды — перед откладкой первой партии яиц.
Взятие мазков из разных отделов яйцевода в течение всего активного периода жизни в 82,2% случаев дало отрицательные результаты. У 17,2% самок сперматозоиды обнаружены в нижней части маточного отдела яйцеводов и во влагалище. У некоторых особей они найдены в большом количестве до овуляции ооцитов первой генерации, что свидетельствует о спаривании черепах до выхода яйцеклеток в яйцеводы. А. Карр [7] упоминает о замечательной особенности самок черепах (вид не указан), которые могут откладывать оплодотворенные яйца на протяжении четырех лет с момента спаривания. С помощью гистологических методов исследования [8] было доказано, что хранилищем сперматозоидов у каролинской коробчатой черепахи служат особые трубчатые образования в каудальной части белкового отдела яйцеводов, где половые клетки сохраняются до 14 мес. В этом плане среднеазиатская черепаха заслуживает изучения. Не исключено, что сперматозоиды способны сохраняться в половых путях самок длительное время.
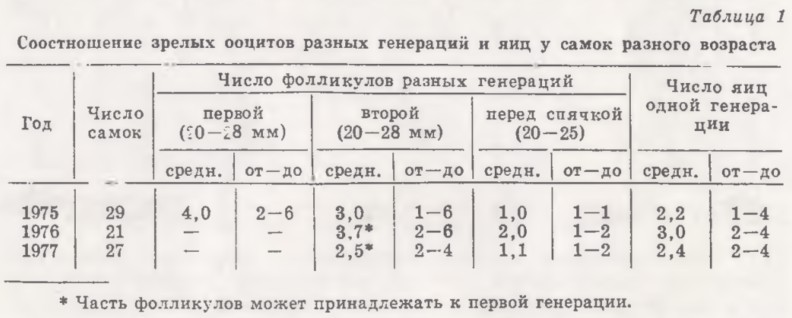
В первой половине апреля в яичниках имеется четыре группы фолликулов на разной стадии развития. Размеры крупных фолликулов первой генерации 23,6 мм (20-28). На одну самку приходится два-шесть таких ооцита. Размер фолликулов следующей генерации меньше - 12,7 мм (8-16) и еще более мелкие 0,3-7 мм. Кроме названных в гонадах заложены многочисленные мелкие фолликулы, равномерно - их величина одинакова. В конца апреля - начале мая, когда в яйцеводах формируются яйца первой генерации, ооциты диаметром 8— 16 мм достигают максимальных размеров и становятся равными таковым первой генерации, но представлены они в меньшем количестве (табл. 1). Это позволяет думать, что вторая кладка по величине несколько меньше первой. В одном яичнике в разные годы одновременно содержится 2,5—4,0 зрелых фолликула одной генерации. Количество же яиц одной генерации в 1975—1976 гг. меньше числа заложенных и развивающихся ооцитов. Следовательно, потенциальная плодовитость (число ооцитов двух генераций) выше фактической (число зрелых яиц в яйцеводах за сезон размножения). Это происходит за счет резорбции ооцитов, отмеченной нами у 60% самок. В двух яичниках число атре- тических фолликулов иногда достигает 9—10, но чаще — 1—3. Из литературы известно, что их резорбция происходит между кладками, в конце периода размножения, и у самок, извлеченных из нор осенью и летом [5, 6]. Кроме указанных периодов это явление мы наблюдали перед началом овуляции первой партии ооцитов. Чаще резорбции под-вергаются мелкие и средние фолликулы, несколько реже — крупные.
В конце мая — первую декаду июня перед залеганием в спячку 70% самок имеют один-два увеличенных фолликула, у остальных особей размеры их 10—12 мм и мельче (см. табл. 1). Следовательно, увеличение ооцитов происходит не только во время летнего и зимнего оцепенения [3—6], но и перед погружением в него. Часть фолликулов подрастает во время спячки, и к весне их количество увеличивается. Весной самки появляются со зрелыми яйцеклетками.
Продолжительность формирования яиц в яйцеводах недостаточно изучена. К. П. Параскив [4] считает, что формирование яиц от момента оплодотворения и до откладывания занимает 8—10 сут. Н. В. Шибанов [9] утверждает, что яйца черепахи откладывают партиями три-четыре раза с интервалом в несколько дней. По мнению других зоологов, формирование продолжается от трех недель до месяца [3, 5]. В исследуемом нами районе самки выходят из убежищ в первых числах апреля, иногда раньше. В 1975 г. особи с готовыми к откладке яйцами встречались 24—25 апреля и в первую декаду мая. Следовательно, пребывание яиц в яйцеводах длится не менее 20 сут. В разные годы эти сроки не совпадают. Так, в 1976 г. 17—18 апреля встречались самки, отложившие яйца. Вторая кладка происходит в конце мая, реже в первую декаду июня. В результате неодновременности развития половых продуктов у животных разного возраста самок со зрелыми яйцами можно встретить с середины апреля по первую декаду июня (см. рисунок). К. П. Параскив [4] делает заключение о трех кладках в сезон. Следует подчеркнуть, что годы нашего исследования отличались исключительной сухостью и вегетация растений полностью завершалась в первую декаду июня. При иных погодных условиях третья кладка, возможно, и состоялась бы за счет зрелых ооцитов, с которыми самки ушли в спячку.
В яичниках единичных самок иногда протекает односторонний оогенез. В этом случае кладка осуществляется за счет деятельности одной из гонад. Следующая же генерация ооцитов развивается в двух половых железах. Как правило, число фолликулов в правом и в левом яичниках неодинаково. Часто больше ооцитов развивается в той гонаде, где прежде их было меньше, т. е. напряженность оогенеза в половых железах чередуется. Интересно, что развитие половых продуктов протекает нормально даже у самок, травмированных сельхозорудиями и имеющих глубокие шрамы на карапаксе и пластроне. Смещение полового цикла наблюдали у самки, заключенной в гудрон, который покрывал ее подобно футляру. Судя по состоянию яйцеводов и отсутствию желтых тел, первой кладки у этой особи не было, но следующая была возможной за счет зрелых ооцитов диаметром 19—23 мм. Нами встречена взрослая самка длиной 157 мм и массой 950 г в возрасте 17— 18 лет с недоразвитыми яичниками и яйцеводами. Размеры ее фолликулов всего 3—4 мм, яйцеводы сужены и укорочены. У особей, содержащихся в неволе, развитие фолликулов нарушается: размеры их зимой и весной до 15 мм, они гиперемированы, уплотнены, их оболочка утолщена.
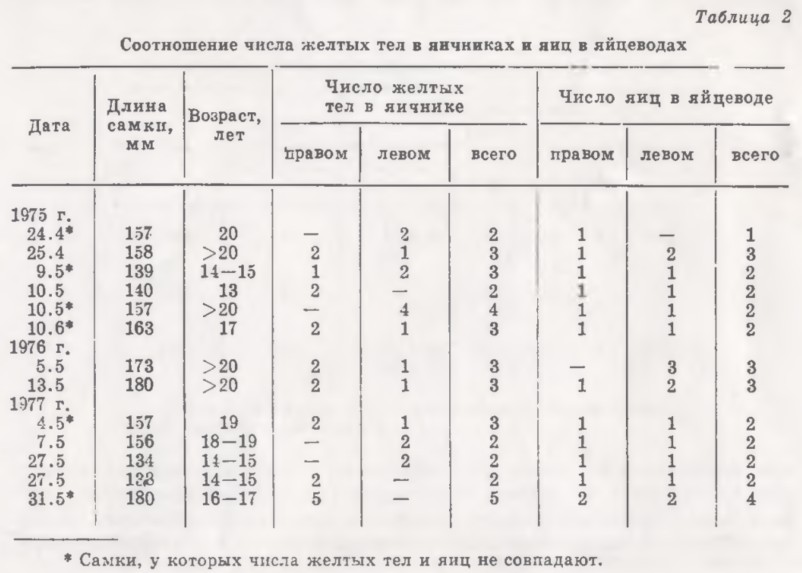
Известно, что после овуляции ооцитов у живородящих и яйцекладущих пресмыкающихся формируются желтые тела. Специфическая функция этих образований у различных видов недостаточно выяснена, и данные о роли и необходимости желтых тел для развития половых продуктов различных овуляторных циклов противоречивы [10]. У среднеазиатской черепахи желтые тела всегда меньше овулированных фолликулов. В апреле, когда заканчивается развитие яиц и происходит рост ооцитов следующей генерации, диаметр желтых тел у разных особей составляет 8—15 мм. У 7,9% особей число желтых тел превышает число зрелых яиц в яйцеводах. Видимо, самки теряют отдельные яйца (нам неоднократно приходилось встречать на поверхности земли единичные яйца), либо их откладывают частично (табл. 2). Об этом же сообщает В. П. Костин [11]. У самок наблюдается переход ооцитов из одного яичника в противоположный яйцевод.
В условиях неволи самки могут длительное время существовать с яйцами в яйцеводах. Так, две особи, прожившие в вольере около года, в первых числах апреля имели яйца в сильно гиперемированных яйцеводах.
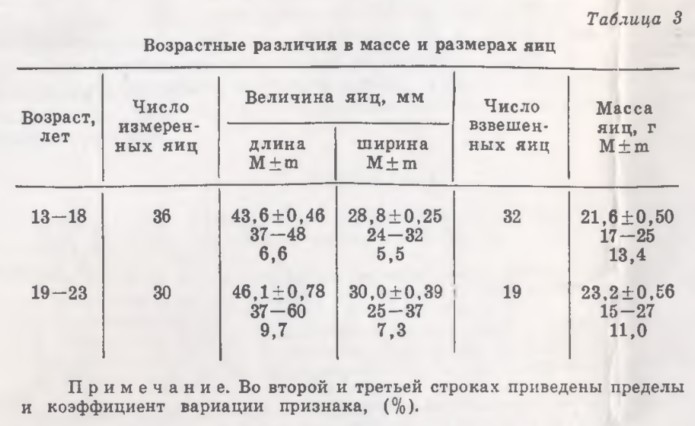
Длина зрелого яйца в среднем равна 44,6 мм (37—60), ширина — 29,6 мм (24—37) и масса — 21,6 г (17—26), т. е. диапазон изменчивости величины яиц гораздо шире, чем указывает К. П. Параскив [4]. В одном и разных яйцеводах яйца могут различаться по длине на 7—9 мм и массе на 1,8 г. Более молодым самкам свойственны меньшие размеры и масса яиц (табл. 3).
Величины размеров яиц варьируют от 5,5 до 9,7%, масса — от 11,0 до 13,4%. Иногда встречаются яйца необычной формы — с сильно заостренными концами либо уплощенные с одной стороны.
Считается, что яйцеклетки поступают в оба яйцевода одновременно, так как они почти всегда содержат яйца на одинаковой стадии развития оболочек [6]. Однако, судя по размерам желтых тел, у некоторых самок овуляция отдельных ооцитов, видимо, происходит с определенным промежутком времени. Размеры желтых тел у одной особи иногда различаются на 5—7 мм. Кроме того, у некоторых особей в одном и разных яйцеводах одни яйца покрыты плотной известковой оболочкой, а вокруг других она едва начинает формироваться.
По нашим данным, за сезон размножения самка в среднем откладывает пять-шесть яиц. Число яиц в кладке от 1 до 4, в среднем 2,5. Подобная плодовитость отмечена у черепах в Киргизии [3] и Таджикистане [5]. В Туркмении для этого вида характерна гораздо большая плодовитость. Здесь за сезон животные делают три-четыре кладки, всего 10—16 яиц [6, 9].
Количество яиц у самок длиной 138 —170 мм составляет 2,3 ±0,02 при коэффициенте вариации 5,2%. У более крупных особей длиной 173—185 мм их число несколько выше — соответственно 3,2 ±0,40 и 3,1%. Имеются сведения, что часть старых самок (1,5%) не размножается [5]. Все обследованные нами особи старше 20 лет (длиной 180— 185 мм и массой 1250—1400 г) успешно участвовали в размножении.
Перезимовавшие молодые особи в апреле-мае следующего года имеют длину в среднем 37,2±0,37 мм (33—44) и массу — 17,2±1,03 г (10,4—30,0). Длина тела молодых особей в возрасте 8—9 мес варьирует незначительно — 6,9%. По массе они весьма неоднородны. Коэффициент вариации массы достигает 31,4%. С учетом того, что варьирование массы яиц составляет 11,0—13,4%, причину увеличения изменчивости следует искать в различном расходовании резервных питательных веществ во время выхода сеголетков осенью, что случается редко, либо после пробуждения их от зимней спячки.
За короткий период активности (2,5—3 мес) самки способны накапливать значительные энергетические резервы, позволяющие благополучно перенести длительную спячку. Жировые вещества откладываются под кожей, в особенности в паховой и шейной областях, а также в полости тела. Кожные покровы упитанных особей приобретают желтоватые тона, а мягкие части тела выпирают из-под панциря. Масса животных значительно увеличивается [1]. Постепенно повышается и масса печени. Вскоре после выхода черепах из зимних убежищ (в первой декаде апреля), когда ооциты первой генерации достигают максимальных размеров, относительная масса пищеварительной железы равна 2,1%. При формировании яиц первой генерации (до конца апреля) масса печени остается такой же — 2,4% (табл. 4). В первой декаде мая одновременно с развитием яиц и ооцитов следующей партии увеличиваются запасные вещества в печени. У неполовозрелых самок питательные вещества не расходуются на процессы, связанные с размножением, и их депонирование идет интенсивнее. Так, в последней декаде апреля индекс печени этих особей составляет 4,7±0,08, у половозрелых — только 2,8 ±0,60. Масса органа особенно возрастает в первой декаде июня, когда кладки яиц завершены и черепахи постепенно уходят в спячку. Индекс печени самок, завершивших размножение раньше, равен 9,1 ±0,58, а особей с поздней последней кладкой — 6,5±0,58. Последние уходят в спячку с меньшим запасом питательных веществ, нежели первые. В одинаковых условиях существования коэффициент вариации массы печени колеблется в широких пределах (14,8—33,7%), что свидетельствует о разном уровне энергетических запасов размножающихся самок. Некоторые особи отличаются исключительно высокой относительной массой печени. Так, у самки, покинувшей зимовочную нору 25 июля 1976 г., он равен 12,1%.
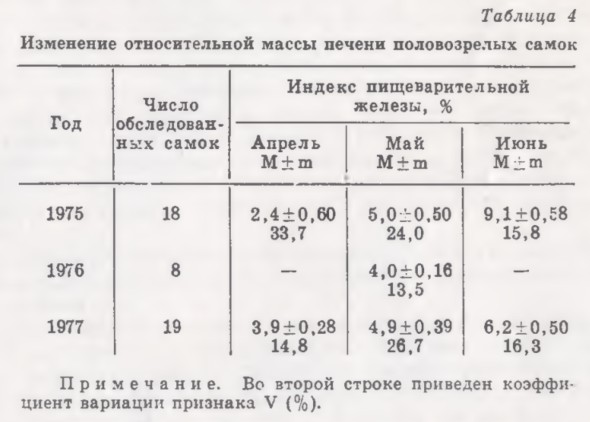
Как видно, отложение резервных питательных веществ у половозрелых и неполовозрелых особей протекает неодинаково. У взрослых самок накопление их происходит во время всего цикла размножения, но особенно усиливается после откладывания яиц. У молодых этот процесс не связан с размножением.
Таким образом, изложенные материалы свидетельствуют о том, что для самок среднеазиатской черепахи свойственно позднее половое созревание и сравнительно низкая плодовитость. Между тем в республике на протяжении многих лет в крупных масштабах осуществляют отлов этих животных на одних и тех же территориях. Кроме того, совершенно недопустимы практикуемые сроки заготовки черепах. Их отлавливают сразу после выхода из зимних убежищ и план заготовок выполняют в основном в апреле, т. е. животных изымают из популяции в период спаривания и до того, как основная масса самок успевает сделать первую кладку яиц. Необходимо в самое ближайшее время заготовку черепах поставить под контроль и отлов их в Алма-Атинской области начинать со второй декады мая, после завершения первой кладки яиц, когда черепахи успевают накопить значительные энергетические резервы.