Некоторые особенности теплообмена у дальневосточной черепахи Trionyx sinensis (Wiegm.)
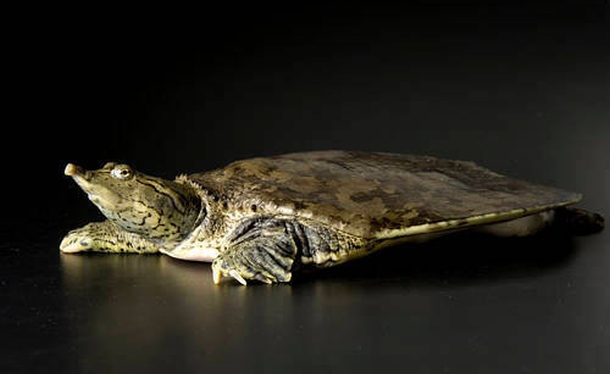
Встречающаяся у нас в Приморье и южных районах Приамурья дальневосточная черепаха, Trionyx sinensis (Wiegm.) относится к семейству трехкоготных черепах, или триониксов (Trionychidae), распространенных преимущественно в тропических и субтропических областях. В отношении своей физиологии эти черепахи характеризуются соответственно значительной теплолюбивостью и, в частности, теми замечательными особенностями, которые определяются наличием у них дополнительно к легочному дыханию также еще глоточно-небного и кожного газообмена. Последнее обстоятельство в немалой степени связано и с удивительными чертами морфологической организации триониксов, прежде всего с отсутствием у них в покровах типичных для прочих черепах роговых щитков, в силу чего они получили еще название и мягкокожих черепах.
Обнаруженное нами еще в начале 50-х годов кожное дыхание у дальневосточной черепахи (Хозацкий, 1979) определило постановку серии исследований ее морфологии и физиологии. Наряду со специальным изучением газообмена нами определялись также и некоторые реакции теплообмена. Соответствующие эксперименты были поставлены на 12 экз. дальневосточных черепах, отловленных в 1949 г. на озере Ханка и любезно предоставленных в наше распоряжение Б. Е. Быховским и А. В. Гусевым. В 1950 г. наши опыты продолжались в Москве совместно с Ю. И. Чепраковой на черепахах, содержавшихся в Московском зоопарке. В дальнейшем они неоднократно повторялись (1973, 1974, 1978 г.) нами и В. Л. Десятсковым в Ленинградском зоопарке при содействии В. А. Иголкиной и В. А. Черлина. Всем этим лицам мы приносим нашу большую благодарность.
Одним из характерных показателей реакций теплообмена у животных следует считать их термопреферендум, т. е. величину предпочитаемой температуры окружающей среды. Для специализированных полуводных триониксов этот показатель целесообразно определять при пребывании черепах в воде. Нами была установлена его величина в пределах 20—25°С. Такую же температуру воды для обеспечения благоприятного содержания дальневосточной черепахи в неволе указывает и М. Д. Махлин (1964). Известно, что предпочитаемые температуры у рептилий, как и у других животных, соответствуют оптимальному режиму протекания всех основных процессов жизнедеятельности (Dawson, 1975). В связи с этим интересны данные о содержании и выращивании дальневосточных черепах в разных температурных условиях: в одном случае при 25—28°, а в другом—13—22°. В первом случае черепахи потребляли в 7 раз больше пищи, чем во втором, и подрастали за зиму в 5—10 раз, тогда как во втором случае лишь в 1.6—6 раз (Kanamoto а. Tеruya, 1978). Отметим, что для созревания яиц этой черепахи также требуется повышенная температура, и она обычно удерживается в пределах 18—29°, превышая на 0.8—1.5° температуру в гнезде, почвы и воздуха (Булдовский, 1936).
Интересно, что многие другие пресноводные черепахи, например, американская Pseudemys scripta (Schoepff) из семейства Emydidae, также предпочитают высокие температуры, до 31—33° (Crawshaw et al., 1980). Разумеется, в природе дальневосточная черепаха далеко не всегда встречается с температурными условиями, близкими к высоким величинам их термопреферендума. Следует принимать во внимание значительные суточные и сезонные колебания температуры среды даже в летний, активный период жизнедеятельности, которому в общем-то и соответствуют эти величины названного показателя. Нередко даже в период еще бодрствования черепахи сталкиваются и с неблагоприятными для себя температурными условиями. Так, нам известен случай сравнительно позднего вылова сетью трионикса на озере Ханка 7 октября 1978 г., когда температура воды в 50 м от берега в 8 час утра равнялась 5.5°, а в 20 час — 8.5° (это была пора начала залегания черепах в зимнюю спячку). В то же время там, где температура воды постоянно слишком низка, триониксы обитать не могут. Справедливо, в частности, отмечает М. В. Охотина (1959), что горные реки, впадающие в Японское море, в которых вода никогда не поднимается выше +14°, совершенно непригодны для существования этих черепах.
О состоянии теплового баланса организма в значительной мере можно судить по величинам температуры тела как во внутренних его частях, так и на разных участках поверхности. Такие измерения температуры мы и производили многократно в условиях нахождения триониксов в воде и на суше. Показателями внутренней температуры тела служили величины ее в клоаке («ректальная температура»), а на поверхности тела температура измерялась в 12—24 точках. Все измерения осуществлялись с помощью специального электротермометра. В воде (20—23°) триониксы находились обычно в весьма спокойном состоянии и при долговременном пребывании в этих условиях температура разных частей тела у них выравнивалась. Часто наблюдалось некоторое превышение (на 0.1—0.7°) как ректальной, так и периферической (на разных участках поверхности) температур тела над температурой воды. Иногда эти превышения доходили до 1° (в клоаке, в подмышечных и паховых впадинах). На поверхности всего спинного щита устанавливалась в общем более или менее одинаковая температура. На пластроне отмечался некоторый термический градиент (до 0.5— 0.8°) между центральными участками брюшного щита и его периферией: более высокой температурой отличались места близ свободных« краев краниальной и каудальной лопастей этого щита.
Сразу после извлечения триониксов из воды на воздухе, где в наших опытах температура обычно была примерно на 0.5° выше, чем в воде, происходило некоторое понижение температуры тела, что вызывалось прежде всего испарением воды с поверхности еще влажной кожи. В это время поверхность тела характеризовалась температурами, даже более низкими по сравнению с температурой воздуха. Интересно, что тогда как на концевых участках кожистых оторочек обоих щитов сразу после перенесения черепах из воды на воздух температура могла быть выше, чем на остальных участках тела, затем с началом обсыхания она именно здесь понижалась наиболее быстро. Ректальная температура в этот период могла оставаться сравнительно высокой, иногда даже превышая температуру воздуха на 0.5—1.0°. Однако примерно уже через полчаса после перемещения триониксов из воды в воздушную среду испарение на их поверхности начинало уменьшаться, и общее понижение температуры тела приостанавливалось.
Следует отметить, что в последней фазе обсыхания тела температура на его поверхности раньше выравнивается и стабилизируется на центральных участках спинного щита, тогда как на свободных частях кожистых оторбчек процесс испарения влаги продолжается. Однако затем наступает момент, когда, наоборот, на этих свободных участках ко времени полного завершения обсыхания температура снова повышается более, чем на других частях тела. На ряде участков пластрона температура также оказывается в среднем более высокой, чем на карапаксе. Ректальная температура за все это время изменяется сравнительно мало.
На конечностях температура распределяется в сторону убывания ее от проксимальных частей к дистальным. Наименьшей температурой характеризуются пальцы и особенно межпальцевые перепонки. Голова имеет, как правило, одинаковую температуру сверху и снизу, а шея в особенности в основании может быть «теплее» головы по крайней мере на 1°. Существенным является также то, что температура кожи на уровне между костными пластинками обоих щитов и в особенности на уровне фонтанелей брюшного щита обычно на 0.1—0.2° выше, чем на соседних участках над самой, поверхностно костей, что, очевидно, следует связывать с неодинаковым распределением на этих участках сетей васкуляризации и усиленной радиацией полостной животной теплоты на местах, не закрытых костными пластинками (фонтанели).
Уже более 20 лет тому назад мы ввели, насколько нам известно впервые, в практику изучения теплообмена у земноводных и пресмыкающихся методику термометрии поверхности тела этих животных (Хозацкий, 1959). Накопленный за это время опыт применения данной методики свидетельствует о том, что температура поверхности тела животных своеобразно отражает некоторые особенности строения и физиологического состояния организма. Было установлено, в частности, что у обычных пресноводных черепах температура поверхности тела, главным образом, на местах, не закрытых панцирем, может опускаться ниже температуры среды, чего, как правило, не бывает у сухопутных черепах (Хозацкий и Толмачева, 1959). У триониксов, несмотря на отсутствие у них ороговений покровов, температура тела, в частности, на поверхности обыкновенно превышает температуру окружающей среды, чт^ цаблюдается как на суше, так и в воде, свидетельствуя о высоком уровне энергетики метаболизма данных черепах. Это обстоятельство следует сопоставить с наличием у триониксов упоминавшегося выше кожного дыхания. Соответствующая ему усиленная васкуляризация кожных покровов, очевидно, и обусловливает несколько повышенную температуру поверхности тела.
В свое время принималось, что температура тела пойкилотермных животных, находящихся в воде, практически не должна отличаться от температуры внешней среды (Гэнн, 1944). Однако именно на пресноводных черепахах было установлено, что, пребывая довольно длительное время в воде, они способны сохранять температуру своего тела на уровне, превышающем температуру воды (Baldwin, 1925). Теперь это видно и на примере триониксов, в дополнение к чему мы можем предварительно сообщить еще о том, что сходные данные получены нами также и для морских черепах Chelonia mydas (L.).
У триониксов оказался и наиболее высокий критический температурный максимум. Так, для Trionyx ferox (Schneid.) его величина была установлена равной 42.3°, тогда как у других пресноводных черепах (Emydidae), а тем более у сухопутных (Testudinidae) этот показатель заметно меньше (Brattstrom, 1965). Отмеченные здесь особенности теплообмена у триониксов можно связать с проявлениями обнаруженного В. Н. Тетюевым (1957) у черепах механизма физической терморегуляции. Совершенно очевидно, что им должна быть присуща и химическая терморегуляция. Достаточное совершенство реакций теплообмена именно у таких черепах как триониксы представляется вполне объяснимым в сопоставлении с высоким энергетическим уровнем их жизнедеятельности.
Высокий уровень обмена веществ, общая значительная напряженность энергетического баланса организма триониксов находят свое отражение во многих проявлениях физиологических функций и в разных биохимических особенностях организма данных черепах. Небезынтересным в связи с этим оказывается, например, то обстоятельство, что в плазме их крови обнаруживается значительное общее количество белков. Так, у североамериканского вида Trionyx spinifer Le Sueur оно равно 5% (у человека 7—8%!), что в 1.5 и более раза превышает соответствующий показатель у ряда других пресноводных, а также морских и сухопутных черепах (по данным ряда авторов; Musacchia a. Sievers, 1956). Было установлено также, что концентрация белков в плазме крови черепах под воздействием, например, разных температур окружающей среды изменяется очень мало.
Белки плазмы крови осуществляют ряд важных физиологических функций. Общее их количество определяет, в частности, так называемое онкотическое (коллоидно-осмотическое) давление плазмы, что, в свою очередь, имеет значение для регуляции водного баланса организма. Эти белки участвуют и в общем белковом обмене всего организма. Наряду с этим следует обратить внимание и на то, что белки плазмы крови воздействуют на поступающие в кровь кислоты и основания как буферные образования. В опытах с североамериканскими пресноводными черепахами Chrysemys picta (Schneid.) было установлено, что во время охлаждения в связи с понижением соответственно температуры тела задерживается выделение из организма СО2 и увеличивается щелочной резерв, что ведет к ненормальному уменьшению дыхательного коэффициента и общему нарушению газообмена (Rapatz, Musacchia, 1957). В наших экспериментах с дальневосточным триониксом в условиях его временного, даже значительного охлаждения (в воде) существенных изменений в балансе потребления кислорода и выведения из его организма углекислоты (правильнее — двуокиси углерода, СО2) не наблюдалось. Это можно объяснить, во-первых, наличием у триониксов механизма кожного газообмена, в первую очередь,, «настроенного» на выведение из организма излишков углекислоты, а также отмеченным выше присутствием в крови триониксов значительного количества белков плазмы крови, обладающих буферными свойствами.
Булдовский А. Т. О биологии и промысловом использовании уссурийской (амурской) черепахи Amyda maakii (Brandt). — Тр. Дальневост. фил. АН СССР,. 1936, т. 1 с. 62—102.
Гэнн Д. Л. Температура тела пойкилотермных животных. — Успехи совр. биол., 1944, т. 17, вып. 1, с. 87—107.
Мах л ин М. Д. Дальневосточная черепаха.- Природа, 1964, № 12, с. 109—110. ОхотинаМ. В. К уточнению границ ареалов некоторых амфибий и рептилий Приморья.— Сообщ. Дальневост. фил. СО АН СССР, Владивосток, 1959, с. 139—143. Тетюев В. Н. Соотношение механизмов химической и физической терморегуляции в филогенезе. — Тр. каф. физиол. челов. и жив. Тадж. гос. ун-та, Душанбе, 1964, с. 65—80.;
Хозацкий Л. И. Температура поверхности тела некоторых земноводных и пресмыкающихся. — Вести. Ленинградск. ун-та, 1959, № 21, сер. биол., вып. 4, с. 92—105.
Хозацкий Л. И. Кожное дыхание дальневосточной черепахи. — В кн.: Герпетология, Краснодар, 1979, с. 43—46.
Хозацкий Л. И. и Толмачева Н. В. Особенности эколого-физиологической специализации пресноводных и сухопутных черепах. — Совещ. по экол. физиол.,. тез. докл., 2, М.—Л., изд. АН СССР, 1959, с. 116—119.
Baldwin F. М. The relation of body to environmental temperatures in turtles : Chrysemys marginata (Gray) and Chelydra serpentina (Linn.). — Biol. Bull.,, Woods Hole, 1925, vol. 48, p. 432—445.
Brattstrom В. H. Body temperatures of reptiles. — The Amer. Midland Naturalist,.
1965, vol. 73, n. 2, p. 376—422.
Crawshaw L. I., Jоhnstоn М.Н. a. Lemons D. Е. Acclimation, temperature selection, and heat exchange in the turtle, Chrysemys scripta. —Amer. J. Physiol., 1980, vol. 238, n. 5, p. 443—446.
Dawson W. R. On the physiological significance of the preferred body temperatures of reptiles. — Ecol. Stud., 1975, n. 12, p. 443—473.
Kanamoto Z. a. Teruya С. [О биотехнике выращивания черепахи Trionyx sinensis в условиях субтропиков]. — Суйсан дзосёку (яп.), Aquiculture, 1978, vol. 26, n. 1, р. 31—35.
Musacchia X. J. a. Siеves M. L. Effects of induced cold torpor on blood of Chrysemys picta. — Amer. J. Physiol., 1956, vol. 187, n. 1, p. 99—102.
Rapatz G. L. a. Musacchia X. J. Metabolism of Chrysemys picta during fasting: and during cold torpor. — Amer. J. Physiol., 1957, vol. 188, n. 3, p. 456—460.
Л. И. Хозацкий
Ленинградский государственный университет
Герпетологические исследования в Сибири и на дальнем Востоке, 1981 г
⇓ Скачать PDF "Герпетологические исследования в Сибири и на дальнем Востоке" сборник со статьями про черепах (6 мб)