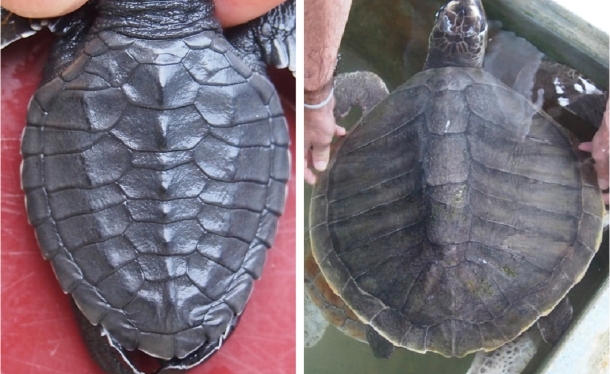
Черепахи обладают уникальным планом устройства роговых щитков панциря. В типичном случае щитки организованы продольными рядами с соблюдением билатеральной симметрии, что отражено в их номенклатуре (вертебральные, плевралные, маргинальные, пластральные и т.д.). Мозаика щитков (фолидоз) характеризуется высокой эволюционной стабильностью базального морфотипа (Zangerl, 1969). Вместе с тем, индивидуальная изменчивость фолидоза панциря черепах имеет необыкновенно широкие пределы, причем как по числу вариантов уклонений от нормы, так и по частоте их встречаемости (Черепанов, 2005; Cherepanov, 2014). На сегодняшний день описаны тысячи аномальных особей черепах, принадлежащие многим современным видам (Zangerl, Johnson, 1957; Ewert, 1979; Pritchard, 2007; Cherepanov, 2014 и др.). Считается, что эта изменчивость связана, прежде всего, с негативным воздействием внешних факторов среды (Lynn, Ullrich, 1950; Telemeco et al., 2013; Zimm et al., 2017; Cordero et al., 2022). Однако некоторые типы аномалий имеют специфический характер и для них предполагают генетический контроль (Zangerl, 1969; Cordero-Rivero et al., 2008; Velo-Anton etal., 2011).
Аномалии щитков подразделяют на три основных типа: 1) атипичная форма или размер щитка, 2) присутствие дополнительных (экстраординарных) щитков, 3) отсутствие некоторых регулярных щитков. Эти типы аномалий могут обнаруживаться раздельно или присутствовать у одной особи (Zangerl, Johnson, 1957; Pritchard, 2007; Cherepanov, 2014). Среди аномальных черепах преобладают асимметричные варианты строения. Роговые аберрации могут затрагивать все отделы панциря, но максимально вариабельна область плевральных и вертебральных щитков. При этом наиболее частым вариантом уклонения от нормы является присутствие дополнительных щитков (Zangerl, Johnson, 1957; Ewert, 1979; Cordero-Rivero, et al., 2008; Cordero, 2023).
Открытие эпидермальных плакод как первичных зачатков щитков (Cherepanov, 1989) и сравнительное исследование хода развития фолидоза у Testudo graeca L. (Testudinidae) и Emys orbicularis L. (Emydidae) позволили судить о базовых механизмах формирования паттерна щитков. Была обнаружена строгая топографическая связь между расположением плакод и сомитной организацией эмбриона. На основе полученных данных была разработана сегмент- зависимая модель развития рогового панциря черепах, раскрывающая морфогенетические причины нарушения устройства щитков (Черепанов, 2005; Cherepanov, 2014; Moustakas-Verho, Cherepanov, 2015; Cherepanov et al., 2019). Ее положения сводятся к следующему:
- Щитки панциря черепах возникают в эмбриогенезе как небольшие локально расположенные эпидермальные плакоды. Плакоды развиваются автономно и представляют собой морфогенетические модули, а мозаика щитков - модульную систему.
- В карапаксе плакоды возникают исключительно в септальных погружениях покровов, расположенных в области поперечных туловищных миосепт. Таким образом, позиция плакод детерминируется первичной сомитной сегментацией эмбриона.
- Маргинальные плакоды развиваются в каждом септальном погружении карапаксального гребня. Их число (12-13 пар) соответствует числу миосепт, разделяющих миомеры панциря. Плевральные (4-5 пар) и вертебральные (5 штук) плакоды располагаются с пропуском через одно септальное погружение и в шахматное порядке относительно друг друга. В норме плевральные плакоды лежат в районах нечетных миосепт карапакса, а вертебральные плакоды - в районах четных миосепт.
- Вертебральные щитки закладываются парными (левым и правым) зачатками, позже сливающимися. Положение контралатеральных зачатков вертебральных щитков, по-видимому, детерминируется положением возникающих ранее плевральных плакод, причем относительно независимо на левой и правой стороне тела.
- Пластральные плакоды (6 пар) возникают позже плакод карапакса по периферии брюшного щита. Их число и расположение относительно маргинальных плакод указывает на то, что они закладываются с пропуском через одну миосепту.
Основная причина аномалий щиткования панциря черепах - наличие «вакантных» (свободных от зачатков щитков) септальных погружений (сегментов тела). Плевральные, вертебральные и, вероятно, пластральные щитки формируются в норме не в каждом, а через один сегмент. При этом эти сегменты не детерминированы строго. Даже небольшие нарушения в ходе эмбрионального развития вызывают аномалии щиткования, в частности, асимметричную закладку и появление вставочных плакод (щитков) в районах вакантных миосепт. Это обусловливает исключительно высокий уровень изменчивости числа плевральных и вертебральных щитков (Рисунок 1).
Как показали морфогенетические и сравнительно-морфологические исследования, расположение вертебральных и плевральных плакод имеет скоррелированный характер. В частности, положение зачатков вертебральных плакод определяется положением возникающих ранее плевральных плакод, а коррелятивные связи между зачатками плевральных и вертебральными щитков на одной стороне тела более устойчивы, чем между левым и правым зачатками вертебрального щитка. Устойчивость указанных морфогенетических связей обуславливает появление двойного ряда асимметричных вертебральных щитков и комплексных аномалий типа «зиг-заг» (см. Pritchard, 2007). Переходя к общему заключению, можно сказать, что вариабельность формы, размера, количества и позиции роговых щитков панциря черепах определяется на эмбриональных стадиях развития такими морфогенетическими процессами, как асимметричная закладка, атипичное слияние, появление дополнительных, редукция регулярных эпидермальных зачатков щитков (плакод).
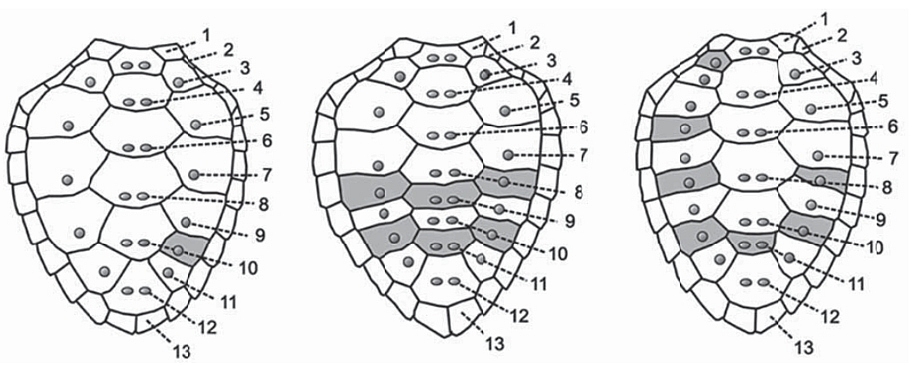
Проверка положений сегмент-зависимой модели была проведена посредством привлечения оригинальных данных по вариабельности щитков у оливковой черепахи Lepidochelys olivacea (Eschscholtz, 1829) - вида, характеризующегося исключительной природной изменчивостью щиткования (Cherepanov et al., 2019). Исследование 655 новорожденных особей L. olivacea выявило 120 паттернов щиткования в карапаксе и 10 паттернов в пластроне. Было установлено, что число вертебральных щитков в ряду варьирует от 4 до 10, плевральных - от 5 до 10, маргинальных - от 10 до 15, пластральных - от 6 до 8. Исходя из морфогенетических данных, теоретически максимальное число вертебральных, плевральных и пластральных щитков в одном ряду у L. olivacea может достигать 11 при условии занятия щитковыми плакодами всех потенциальных септальных зон (вакантных сегментов). Близкое к максимально возможному число плевральных и вертебральных щитков в количестве 10 элементов зарегистрировано у 3 особей. Таким образом, превышение теоретически рассчитанного максимального числа вертебральных, плевральных и пластральных щитков нами не обнаружено.
У изученных особей L. olivacea в карапаксе оказались реализованными абсолютно все теоретически возможные варианты расположения щитков. При этом ни у одной особи полный набор регулярных и дополнительных щитков нами не был обнаружен. Даже при крайне полимерном состоянии фолидоза плевральные и вертебральные щитки располагаются так, что их число никогда не превышает одного на сегмент (= миосепту). При этом число щитков в указанных сериях всегда меньше, чем число маргинальных щитков, т.е. общее число щитков в продольном ряду не превышает числа сегментов тела, на протяжении которых этот ряд формируется. В отличие от карапакса в пластроне исследованных L. olivacea реализована в только незначительная часть теоретически возможных вариантов расположения щитков. Наиболее частая аномалия - наличие дополнительных щитков на переднем и заднем конце пластрона. Вставочные щитки обнаружены только в области между регулярными гумеральным и пекторальным щитками.
Несмотря на широчайший полиморфизм оливковой черепахи, все обнаруженные паттерны фолидоза не выходят за рамки теоретически возможных вариантов, определяемых сегмент-зависимой моделью. Результаты верификации подтверждают наличие строгой морфогенетической связи между числом и распределением щитков на панцире и сомитной организацией эмбриона. Именно наличие этой связи обусловливает ключевую черту устройства мозаики щитков панциря черепах, а именно, исключительную устойчивость базового паттерна фолидоза при широком спектре межвидового и внутривидового варьирования.
Исследование поддержано Санкт-Петербургским государственным университетом (экспедиционный грант№ 1.42.1095.2016) Российским фондом фундаментальныхисследований (грант РФФИ № 18-04-01082).