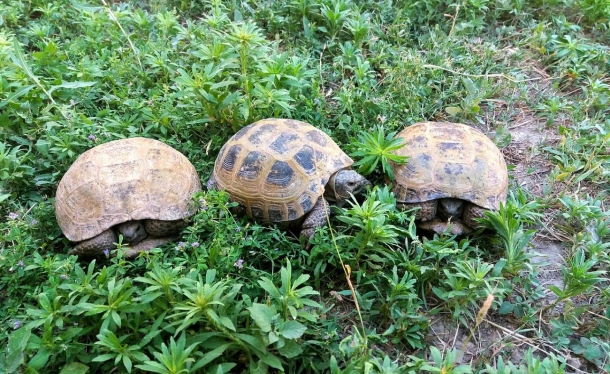
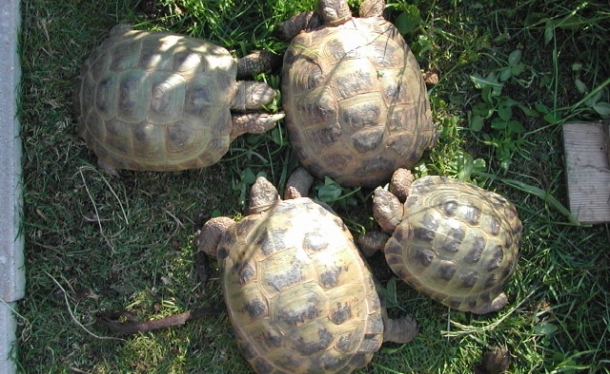
На протяжении двух весенних сезонов исследовались перемещения меченых особей среднеазиатской черепахи. Помечено 117 черепах, из них повторно (от 1 до 12 раз) встречено 78. Обработаны данные 140 повтор ных встреч. Самцы в среднем перемещаются более широко, чем самки. Среднее расстояние между крайними точками встреч самцов составляет 66±11 м, самок—50±8 м. Максимальная дистанция перемещения самцов равна 170, самок — Т50 м. Единственный социальный фактор, определяющий размах перемещения черепах,— необходимость поисков рецептивных самок самцом. Поиски носят случайный характер. Какие-либо устойчивые связи между особями полностью отсутствуют. Драки самцов не связаны с конкуренцией из-за пространства, а происходят по двум причинам: 1) соперничество самцов, пытающихся спариваться одновременно с одной и той же самкой; 2) попытки самца копулировать с другим самцом, приводящие к агрессивному ответу со стороны последнего. Пространственная организация популяций среднеазиатских черепах определяется чисто индивидуальными потребностями слагающих ее особей и не обладает сколько-нибудь развитыми регуляторными механизмами социального характера.
В эколого-этологических исследованиях последних десятилетий одно из важнейших мест занимает вопрос о способах социальной организации в популяциях животных. На фоне огромного материала, собранного в этом плане по таким группам животных, как птицы, млекопитающие и отчасти рыбы, ощущается известный дефицит соответствующих сведений по амфибиям и рептилиям.
В ходе нашей работы, основной целью которой было исследование механизмов коммуникации у среднеазиатской черепахи, мы получили некоторые материалы по пространственной организации популяций этого вида. В настоящей работе рассмотрены вопросы о степени подвижности особей, величине их участков обитания и характере перемещения черепах внутри таких участков. Наблюдения за индивидуально помеченными животными позволяют судить также о характере взаимодействий между индивидуумами разных полов или одного пола в пределах постоянной группировки особей, привязанной к определенному участку местности.
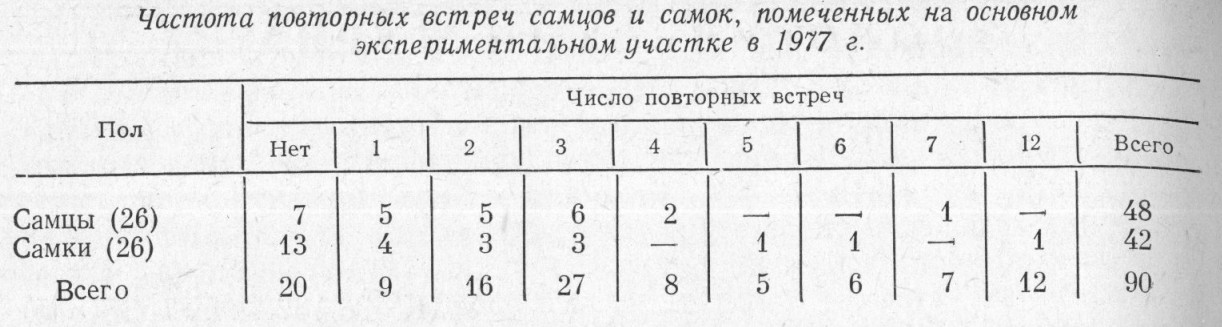
Исследования проведены с 26 марта по 8 мая 1976 г. и со 2 апреля по 13 мая 1977 г. в урочищах Акар-Чешме и Кызыл-Джар (западная часть Бадхызского заповедника). Основные наблюдения сделаны на экспериментальных участках площадью 1500 м2 в 1976 г. и 14 000 м2 в 1977 г. Всего помечено 117 черепах: на первом участке — 30, на втором — 69 и еще 18 экз.— за пределами основного участка наблюдений. Из них в дни, следующие за днем мечения, были повторно встречены (от 1 до 12 раз) 78 особей. Максимальный промежуток между датой мечения и датой последней встречи — 31 день. Всего в нашем распоряжении имеются сведения по 140 повторным встречам. Данные по частоте повторных встреч на основном экспериментальном участке в 1977 г. приведены в таблице.
Первоначально черепах метили номером, нанесенным на бумажный квадратик размером 1,5 х 1,5 см, который приклеивали к карапаксу кусочком прозрачной липкой ленты. Однако этот простой и очень удобный способ мечения не удовлетворил нас полностью. Хотя в принципе такая метка может держаться до 26 дней (и, вероятно, долее), она все же оказывается недостаточно устойчивой. Поэтому в 1977 г. мы изменили метод мечения: большой номер наносили прямо на карапакс черным или красным нитролаком при помощи намотанного на палочку ватного тампона. Краска высыхает в течение 2—3 мин, а номер хорошо виден в бинокль, что позволяет опознавать меченых черепах, не подходя к ним на близкое расстояние и не тревожа их.
ФЕНОЛОГИЯ И РАЗМЕЩЕНИЕ СРЕДНЕАЗИАТСКИХ ЧЕРЕПАХ В 1976—1977 гг.
Годы наших наблюдений резко отличались друг от друга по ходу весны. В 1976 г. весна была необычайно поздней, с обильными снегопадами 26 марта и 2 апреля. Погода была холодной и дождливой вплоть до самых последних чисел апреля. Все это привело к развитию буйной травянистой растительности, совершенно не характерной для исследуемого региона. В 1-й декаде мая вегетация была в самом разгаре, тогда как в обычные годы травянистая растительность почти полностью выгорает на солнце уже к последней декаде апреля. Эти особенности весны 1976 г. совершенно определенно отразились на ходе фенологических явлений у черепах и на характере размещения особей внутри участка наших наблюдений. Выход черепах с зимовки был очень поздним. 1-й экз. обнаружен на поверхности только 2 апреля. Массовый выход из нор зарегистрирован 11—12 апреля. Контакты, включавшие попытки сближения самцов с самками, собственно копуляции и драки между самцами были длитель- тельными и довольно многочисленными (всего описано 30 контактов). Сплошной травяной покров способствовал равномерному размещению пищевых ресурсов и соответственно — равномерному размещению животных на исследуемом участке.
Весна 1977 г., напротив, оказалась очень ранней. Черепахи вышли из зимовочных нор в начале марта. Вероятно, основной пик социальной и сексуальной активности к началу наблюдений (2 апреля) уже миновал. Об этом, в частности, свидетельствует тот факт, что у многих самок, от-ловленных в 1-й пятидневке апреля, при осмотре и измерениях из клоаки выделялась старая сперма, разделенная на жидкую и хлопьевидную фракции. Это значит, что такие самки были оплодотворены несколько дней назад.
Начало наших работ совпало с резким похолоданием, продолжавшимся с 1 по 4 апреля. В эти дни температура на почве в утренние часы (8—11 ч) не превышала 17—19°, поднимаясь к середине дня не выше 25°. Все черепахи в это время ушли в постоянные или во временные норы. Лишь некоторые покидали свои убежища (температура в которых удерживалась на уровне 10—14°) днем. Однако при этом они не отходили от нор, не кормились после мечения и быстро закапывались. С наступлением резкого потепления 5 апреля число активных животных на экспериментальном участке стало быстро возрастать. И самцы и самки интенсивно кормились. Социальные контакты были немногочисленны: в период между 6 и 8 апреля наблюдалось только 6 попыток копуляции (из которых, вероятно, лишь 1 или 2 привели к коитусу) и 2 короткие драки между самцами. Безрезультатные попытки самцов копулировать с самками отмечены 11 апреля (2) и 14 апреля (2), драки самцов — 11 и 17 апреля (по одной). Всего зарегистрировано 15 контактов (50% от числа контактов, наблюдавшихся в 1977 г.).
Уже в начале 2-й декады апреля участки свежей растительности со-хранялись только на склонах северной экспозиции, где в силу этого на-блюдалась высокая концентрация черепах. На южных склонах они практически не отмечались. Особи, помеченные в период похолодания на южных склонах, переместились на ближайшие к местам их мечения участки склонов северной экспозиции. С середины 3-й декады апреля численность черепах начала резко сокращаться. Последние единичные меченые особи отмечены с 7 по 9 мая; в 1976 г. в это время черепахи были еще достаточно многочисленны. В 1966 г. массовый выход был в начале марта, в мае черепах стало меньше, а в июне они практически исчезли. Летняя спячка переходит в зимнюю и длится 270—280 дней (Коротков, 1967).
ПРОСТРАНСТВЕННОЕ РАЗМЕЩЕНИЕ ОСОБЕЙ И ВЕЛИЧИНА УЧАСТКОВ ОБИТАНИЯ
Все полученные нами материалы свидетельствуют о том, что каждая особь в популяции среднеазиатской черепахи очень тесно привязана к определенному участку местности. Однако величина этих участков обитания весьма изменчива. Прежде всего создается впечатление, что подвижность самок меньше, чем самцов. Крайние точки повторных встреч меченых особей в среднем удалены друг от друга на 50±8 м у самок (N = 16) и на 66± 11 м у самцов (N = 23). Большое значение стандартных ошибок указывает на сильный разброс значений в пределах каждой из этих выборок. С одной стороны, известно несколько случаев, когда особи обоих полов отмечались повторно только в непосредственной близости от места первой поимки и мечения (иногда — в той же самой точке местности). С другой стороны, существуют и гораздо более мобильные животные с обширными участками обитания. Для самцов максимальное расстояние между наиболее удаленными друг от друга точками встреч одной и той же особи составляет 170 м, для самок — 150 м.
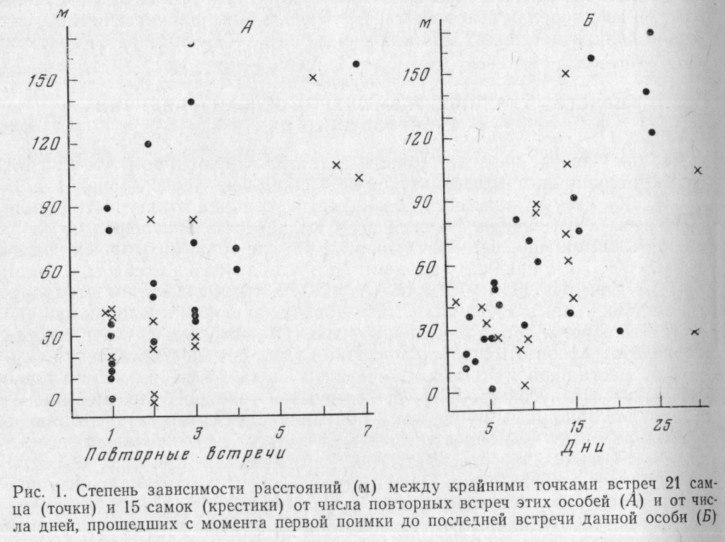
Возникает вопрос, с чем связан столь большой разброс в величине участков обитания. Можно было бы думать, что в тех случаях, когда по-вторные встречи удалены от места мечения и друг от друга на короткие дистанции порядка 5—20 м, мы имеем дело не с истинным размахом перемещения особей, а с артефактом вследствие малого числа повторных встреч. На рис. 1, А показано, что это не совсем так. Для особей, встреченных одинаковое число раз, расстояния между наиболее удаленными точками их встреч могут быть совершенно различными. Так, среди самцов, каждый из которых встречен повторно 3 раза, расстояния между максимально удаленными точками их встреч составляли для 3 особей около 40 м, а для 3 других — соответственно 70, 140 и 170 м. В то же время самец, попадавшийся на глаза чаще других (7 раз), имел участок обитания с максимальным поперечником около 155 м. Не обнаружено также тесной корреляции между максимальными поперечниками участков обитания отдельных особей и числом дней, отделяющих дату мечения особей от дат их последних встреч (рис. 1, Б). Правда, в отношении самцов (но не самок) намечается тенденция к существованию прямой зависимости между числом дней, прошедших от первой до последней поимки, и величиной участка обитания. Однако вполне очевидно, что этот фактор не может объяснить всю наблюдаемую изменчивость размеров участков обитания, которая несомненно связана также с различиями в биологических и экологических потребностях разных особей, меняющихся на протяжении годового и репродуктивного циклов.
Из рис. 1 следует также, что дистанции между крайними точками встреч, превышающие 100 м, являются исключениями и для самцов и особенно - для самок. Большая в среднем величина участков обитания самцов обусловлена, как мы полагаем, их повышенной двигательной активностью в начальный период после выхода из зимней спячки, когда они широко перемещаются в поисках самок. В пользу этого предположения свидетельствуют как прямые, так и косвенные данные. Хронометраж поведения сексуально активного самца, передвигающегося явно в поисках самки, показал, что он может пройти отрезок пути длиной более 120 м всего за 33 мин. Иными словами, за такое малое время самец покрывает расстояние, составляющее 75% от максимальной дистанции между крайними точками его встреч, зарегистрированными на протяжении 21 дня. Здесь интересно отметить, что средняя величина максимального поперечника участков 5 самцов, пытавшихся копулировать с самками в 1977 г., составляет 85+26 м, а 10 самцов, не вступавших в сексуальные контакты, — 68± 15 м. Хотя различия не достоверны (прежде всего, в силу малых объемов выборок) , намечается некоторая тенденция к более широким перемещениям самцов, еще сохранивших готовность к спариванию в конце репродуктивного сезона.
Со спадом сексуальной активности самцы перестают разыскивать самок. Отныне их временной бюджет в светлое время суток распределяется между кормлением и пребыванием в состоянии покоя. В промежутках между кормлениями самцы неподвижно лежат прямо на поверхности почвы, лишь слегка закопавшись в сухие листья в тени фисташки, или в неглубокой норе-времянке, куда черепаха закапывается до середины туловища, или же, наконец, в случайно найденной на пути глубокой долговременной норе. По мере повышения дневных температур, усиления инсоляции, способствующей все большему выгоранию растительности, и приближения начала летней спячки периоды кормления сокращаются, а периоды покоя возрастают. Это влечет за собой и сокращение общего размаха перемещений самца внутри его участка обитания. Данные по трем самцам, для которых отмечено от 3 до 7 повторных встреч на протяжении 17—21 дня, показывают, что в первые дни после окончания похолодания точки повторных встреч более удалены друг от друга, чем точки повторных встреч незадолго перед уходом этих самцов в летнюю спячку. Все сказанное может служить объяснением наблюдаемого большого разброса в величине участков обитания самцов: чем раньше до начала наших наблюдений самец вышел из состояния половой активности или чем позже он помечен, тем меньше должен быть его участок обитания. Таким образом, изменчивость размеров участков обитания отражает, вероятно, вариации в ходе эндогенных физиологических циклов у разных особей.
В отличие от самцов, перемещения самок совершенно не связаны с активными поисками брачного партнера. Для того чтобы осуществилась копуляция, самке нет необходимости широко перемещаться: самцы копулируют не только с активно движущимися самками, но и с теми, которые греются на солнце, не выходя полностью из своих зимовочных нор, или неподвижно лежат в неглубоких норах-времянках. Мы наблюдали 8 таких копуляций из 36 (22,2%).
Таким образом, величина участка обитания самок определяется, вероятно, только их кормовыми потребностями. Максимальные расстояния между крайними точками встреч зарегистрированы для тех двух самок, которые проводили период весеннего похолодания на склонах южной экспозиции, а впоследствии (с прогрессивным выгоранием растительности на этих склонах) переместились на богатые травянистым кормом склоны северной экспозиции. Кормовые участки, на которых эти самки оставались в дальнейшем, были невелики по сравнению с расстояниями, отделяющими эти участки от первоначальных мест мечения. Максимальные поперечники двух таких участков составляли 60 и 72 м, тогда как расстояния, отделяющие их от мест мечения этих самок, были равны соответственно 108 и 150 м.
Некоторые данные наводят на мысль, что самки, помеченные около своих (зимовочных?) нор на южных склонах и кормившиеся впоследствии на северных, могут систематически или эпизодически возвращаться на ночевку в эти норы. В пользу этого предположения свидетельствуют также наблюдения за одной из самок, пережившей похолодание (а, возможно, и всю зиму) в глубокой постоянной норе на склоне северо-западной экспозиции. Эта самка ночевала в своей норе 7, 8, 10, И, 13, 14, 17, 22, 23, 26 и 27 апреля и определенно отсутствовала здесь 24—25 апреля. Нора находилась в центре кормового участка, максимальный поперечник которого был равен примерно 100 м. Эти факты, так же как и ряд прямых наблюдений, показывают, что самка прекрасно умела находить дорогу к своей норе с любой окраины своего кормового участка. Путь ее движения не был раз и навсегда избранным и заученным.
Итак, можно предположить, что по крайней мере для некоторых самок глубокие ночевочные норы могут служить важным фактором их привязанности к своим участкам обитания. Вообще создается впечатление, что самки более тесно связаны с определенными норами, чем самцы, и могут находиться в них, не выходя на поверхность, по несколько дней — не только в периоды похолодания, но даже при благоприятных погодных условиях, когда другие особи активно кормятся. Вероятно, именно с этим связаны заметные различия в характере встречаемости самцов и самок, отмеченные также Коротковым (1967).
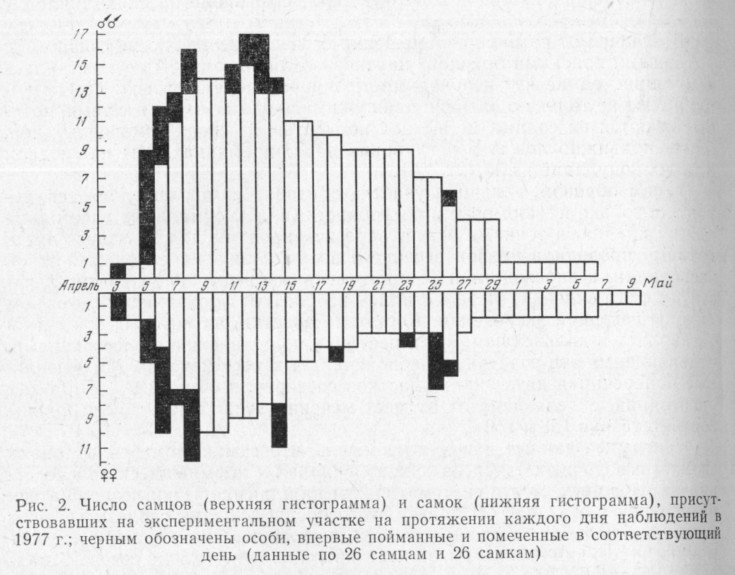
При равном числе помеченных самцов и самок (по 26 особей того и Другого пола в 1977 г. на основном экспериментальном участке — см. таблицу) в каждый данный момент времени нам попадалось больше ак-тивных самцов, нежели самок. Кроме того, если у самцов новые, еще не помеченные особи практически не отмечались в районе основных наблю-дений после 14 апреля (за исключением единственного случая — 26 апреля), то не меченые самки появлялись здесь 18, 23, 25 (4 особи) и 26 апреля — всего 7 зкз. (рис. 2). Интересно, что средняя длина этих самок составляла 16,4± 1,8 см, т. е. была значительно меньше средней длины самок, помеченных до 14 апреля (21,2±0,5 см, различия достоверны при р = 0,05). Можно полагать, что эти мелкие самки были неполовозрелыми, проводившими большую часть времени в своих постоянных норах.
Здесь уместно упомянуть данные Брушко (1978) о том, что самки среднеазиатской черепахи выходят из зимней спячки в среднем позднее чем самцы.
Все сказанное не дает оснований утверждать, что привязанность к определенным норам определяет связь всех без исключения самок и всех самцов с их участками обитания. Большое количество наблюдений показывает, что самки нередко проводят ночь в неглубоких норах-вре-мянках, куда они закапываются перед заходом солнца рядом с местом предшествующей кормежки. У самцов мы ни разу не наблюдали хотя бы двукратного использования одной и той же норы для ночлега одной и той же особью. Одна из нор, в которой поочередно, по одному разу ночевали 2 разных самца, в другие дни пустовала. Самцы, так же как и самки, часто ночуют в неглубоких норах-времянках.
Таким образом, трудно сказать, какие факторы прямо ответственны за привязанность большинства особей к их постоянным участкам обитания. В качестве первого предположения напрашивается мысль, что преимуществом может служить уже самое общее знакомство с местностью, в которой данный индивидуум обитает, вероятно, из года в год (см., например, данные по черепахе Chrysemys picta, Witfield, 1968).
ПРОСТРАНСТВЕННАЯ ОРГАНИЗАЦИЯ ПОПУЛЯЦИИ И ХАРАКТЕР СОЦИАЛЬНЫХ ВЗАИМОДЕЙСТВИЙ МЕЖДУ ОСОБЯМИ
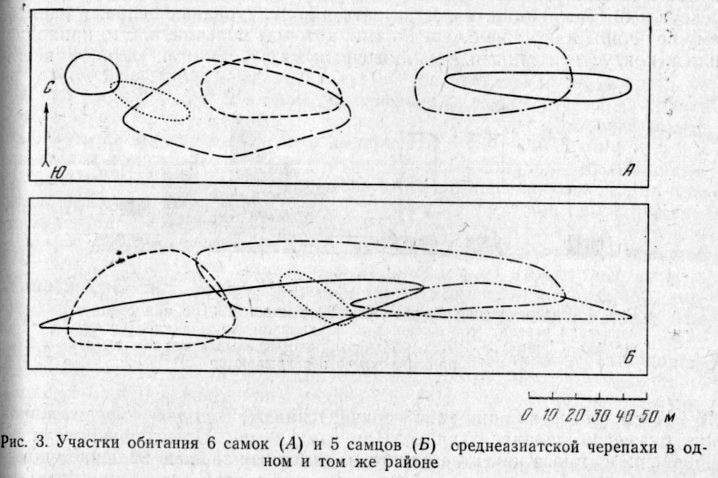
В популяции среднеазиатской черепахи участки обитания отдельных особей широко перекрываются, а иногда почти полностью налегают друг на друга. Это касается как самок, так и самцов. В одной и той же точке наблюдений на протяжении нескольких последовательных дней мы от-мечали максимально до 10 самцов и до 5 самок. Характер перекрывания участков обитания некоторых особей, по которым имеется достаточное количество повторных встреч, показан на рис. 3.
Ни самцы, ни самки не вступают в конфликты с особями своего или противоположного пола на почве охраны своего участка. Самки при встречах друг с другом вплотную (которые крайне редки) вообще не проявляют никаких специфических реакций и мирно расходятся в разные стороны. Что касается самцов, то конфликты между ними разлагаются на две категории, ни одна из которых не связана непосредственно с конкуренцией из-за пространства. К первой категории относятся драки самцов, которые одновременно пытаются копулировать с одной и той же самкой. Мы наблюдали четыре конфликта этого типа в 1976 г. и только один — в 1977 г. К другому типу конфликтов относятся драки двух самцов в отсутствие самки. Такого рода столкновения отмечались пять раз в 1976 г. и пять раз — в 1977 г.
В отношении этого второго типа конфликтов можно было бы думать, что они связаны с охраной участка. Предположение о существовании зачатков территориальности у черепах Gopherus agassizi высказано в работе Петтерсона (Patterson, 1971). Этот автор считает, что самцы могут маркировать свой участок пахучими испражнениями, которые играет роль отпугивающих меток, снижающих плотность населения самцов. Хотя испражнения самцов среднеазиатской черепахи действительно обладают иногда резким специфическим запахом, ничто не указывает на их функционирование в качестве ольфакторной территориальной метки. Точно так же прямые столкновения самцов, иногда оказывающиеся весьма длительными (максимально до 40 мин, а возможно — и более), определенно не связаны с функцией охраны участка. Их причина состоит в том, что самцы среднеазиатской черепахи не обладают развитыми механизмами дистантного опознания пола других особей.
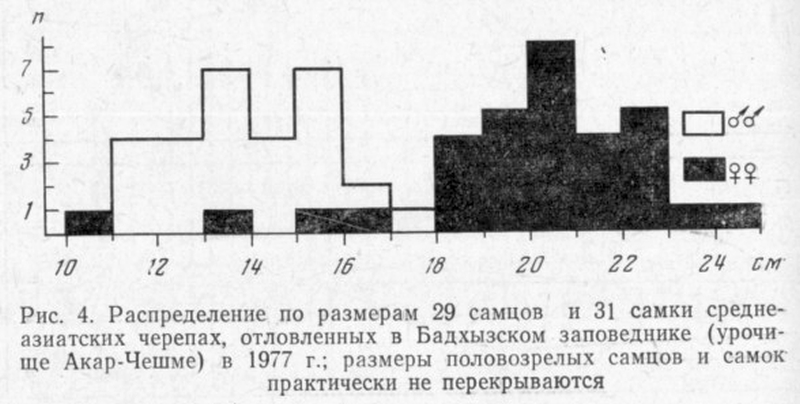
По данным Брушко и Кубыкина (1977), половозрелость у среднеазиатской черепахи наступает при длине 112—139 мм, и половозрелые особи численно преобладают. Половозрелые самцы и самки резко различаются по общим размерам (рис. 4). Вероятно, для самца первым и наиболее надежным признаком для опознавания пола встреченной особи служит величина последней. Поэтому готовые к спариванию самцы обычно сближаются с более крупными особями, среди которых, естественно, больше самок. Однако самец, находящийся в состоянии очень высокой сексуальной мотивации, может пытаться копулировать с особями равной ему величины или даже с черепахами, которые мельче его. Это приводит или к коитусу с мелкими (неполовозрелыми?) самками длиной всего 16—17 см (известен один такой случай) или же к драке, если ухаживания оказываются адресованными другому самцу. Предсовокупительное поведение самца в качестве одного из основных звеньев включает покусывание передних лап самки и просовывание головы спереди под ее панцирь. Эти действия, будучи адресованы другому самцу, вызывают у того резко агрессивную реакцию, приводящую к бегству противника или к развитию настоящей драки. Интересно, что в драках низкой интенсивности один из самцов иногда продолжает демонстрировать элементы предсовокупительного поведения или даже пытается делать садки на своего противника (по этому поводу см. также Madison, 1977). Брачное и агрессивное поведение среднеазиатской черепахи будет подробно проанализировано нами в другой работе.
Широкое перекрывание участков обитания каждой самки с участками многих самцов приводит к тому, что с этой самкой в разные дни пытаются копулировать разные самцы. Среди 38 самок, помеченных за два сезона в пределах постоянных участков наблюдений, с четырьмя самками в разные дни пытались спариваться по два разных самца. Минимальный промежуток между попытками двух самцов копулировать с одной и той же самкой составляет 3 дня, максимальный — 7 дней. Мы также наблюдали две попытки самца спариваться с одной и той же самкой, разделенные промежутком в 4 дня (15 и 19 апреля 1976 г.). Надо заметить, что в большинстве случаев повторные попытки самцов копулировать с данной самкой не встречают с ее стороны адекватного ответа и не приводят к коитусу. Хотя самец нередко проделывает весь репертуар предкопуляционного и совокупительного поведения, сперма не попадает в клоаку и может изливаться просто на землю. Можно полагать, что самка рецептивна лишь один раз на протяжении репродуктивного периода, так что все повторные попытки разных самцов копулировать с ней не приводят к многократному оплодотворению.
В популяции среднеазиатских черепах отмечены также случаи последовательных копуляций одного самца с двумя разными самками. В 1976 г. нам был известен лишь один такой самец из 19 помеченных [10 из них вступали в контакты с самками). В 1977 г. около самок наблюдали шесть самцов, три из них поочередно пытались спариваться с разными самками. Минимальный промежуток между контактами одного самца с разными самками составляет 1 день (7 и 8 апреля), максимальный — 8 дней (6 и 14 апреля).
Таким образом, отсутствие каких бы то ни было территориальных запретов в популяции среднеазиатской черепахи приводит к развитию промискуитетных отношений между полами.
Приведенные данные показывают, что большинство особей в популяции среднеазиатской черепахи ведут сугубо оседлый образ жизни, по крайней мере, на протяжении одного сезона, а, скорее всего, из года в год. Хотя отсутствие повторных встреч по ряду меченых особей может указывать на возможности более широких перемещений самцов и самок в пределах популяции, более вероятно, что экземпляры, не встречавшиеся после мечения, отловлены в момент их эпизодических заходов на наш экспериментальный участок с соседствующих территорий. Действительно, самец, помеченный на нашем участке 12 апреля и затем не встречавшийся долгое время, был позднее найден в соседней долине, отделенной от участка наблюдений невысоким водоразделом (повторные встречи 26 апреля и 6 мая). Зарегистрирован также переход одного самца, помеченного в упомянутой долине, на наш экспериментальный участок, где этот самец повторно отмечался трижды. Кратчайшее расстояние между этими двумя участками местности составляет по прямой через водораздел не более 120 м, т. е. приближается к максимальному размаху перемещений наиболее подвижных особей. Если же два кормных травянистых участка разделены вдвое большим расстоянием (порядка 200— 250 м), то обмен особями между ними практически отсутствует. В 1977 г. мы пометили 18 черепах (11 самцов и 7 самок) на травянистом склоне северной экспозиции, кратчайшее расстояние от которого до нашего экспериментального участка не превышало 250 м. Ни одна из этих особей, постоянно державшихся в районе мечения, не была впоследствии встречена на нашем участке.
Таким образом, популяция среднеазиатских черепах в районе наших работ слагается из локальных группировок особей, или демов. Внутри каждого дема характер перемещений особей зависит только от их индивидуальных потребностей (меняющихся на протяжении годового периода активности) и очень мало связан с какими-либо определенными межперсональными взаимодействиями. Единственный социальный фактор, влияющий на размах перемещения особей, — потребность самцов передвигаться в поисках рецептивных самок. Эти поиски ведутся по способу проб и ошибок и не выглядят сколько-нибудь направленными. Таким образом, можно сделать вывод, что пространственная структура популяции у среднеазиатской черепахи относится к наиболее примитивному, «Диффузному» типу, для которого характерно минимальное число социальных влияний и запретов.
Брушко 3. К., 1978. Материалы по размножению среднеазиатской черепахи в Южном Прибалхашье. Тр. Зоол. ин-та АН СССР, 74: 32—35.
Брушкор 3. К., Кубыкин Р. А., 1977. Морфологические особенности среднеазиатской черепахи в некоторых популяциях Южного Прибалхашья. Изв. АН КазССР, сер. биол., 3: 30—37.
Коротков Ю. М., 1967. О численности степной черепахи (Testudo horsfieldi Gray) в Бадхызе. Зоол. ж., 46, 12: 1863—1864.
Madison D. М., 1977. Chemical communication in amphibians and reptiles. In: «Chemical signals in vertebrates»: 135—168, ed. D. Muller — Schwarze, M. M. Mozell.
Patterson R., 1971. Aggregation and dispersal behavior in captive Gopherus agassizi. J. Herpethol., 5: 214—216.
Whitfield G. J., 1968. Population structure and survivorship in the painted turtle, Chry. semys picta. Copeia, 2: 260—268.