ВВЕДЕНИЕ
Болотная черепаха Emys orbicularis внесена в Красный список МСОП с категорией таксона, находящегося в состоянии, близком к угрожаемому - «Near Threatened» (NT) (Red List., 2020). Восточная часть ареала заходит в речные бассейны Волги и Урала, где вид представлен популяциями гаплолинии I номинативного подвида E. o. orbicularis (Дуйсебаева и др., 2019; Lenk etal., 1999 ). Адаптации этой наиболее широко распространенной внутривидовой формы (Joos et al., 2017) к различным природно-географическим условиям отягощаются в настоящее время возрастающим прессом антропогенных и климатических изменений на среду обитания.
Исследования крови особей, представляющих отдельные популяции болотной черепахи, носят разрозненный и фрагментарный характер (Лобода, 1998; Большакова, Бакиев, 2005; Байрамбекова и др.., 2017; Alder, Huber, 1923; Duguy, 1967; Lukakis, Haritos, 1973; Lukakis, 1974; Musquera et al., 1976; Palomeque et al., 1977; Vasse, Beaupain, 1981; Ugurta et al., 2003; Metin et al., 2006; Colagar, Jafari, 2007; Arikan, Cicek, 2010; Javanbakht et al., 2013). Между тем гематологические исследования предоставляют ценный диагностический материал для мониторинга состояния природных популяций при решении природоохранных задач и совершенствовании методов регуляции численности эктотермных животных. Сравнительные исследования физиологических показателей здоровых и больных черепах являются весьма информативными при оценке состояния здоровья этих животных как из природных популяций, с целью сохранения их численности, так и содержащихся в неволе, при их лечении (Васильев, 2016; Bolten, Bjorndal, 1992; Hasbun et al., 1998; Knotkova et al., 2002; zvegy etal., 2015).
Актуальность нашего исследования определяется и необходимостью изучения эколого-физиологических особенностей природных популяций болотных черепах, позволяющих им выживать и расширять ареал, важных для решения фундамен- тальных и прикладных вопросов о роли иммунных реакций и системы крови в адаптации к изменяющимся условиям среды обитания.
Целью работы являлась сравнительная оценка лейкоцитарного профиля болотной черепахи из популяций Уральского бассейна (Оренбургская область) и Волжского бассейна (Астраханская область).
МАТЕРИАЛ И МЕТОДЫ
Объектами исследования явились половозрелые особи болотной черепахи, добытые в Российской Федерации: Оренбургской области (Беляевский район, окрестности участка «Буртинская степь» Оренбургского заповедника; 16 - 17 июня 2020 г.; 16 особей - 11 самок и 5 самцов) и Астраханской области (Красноярский район, окрестности пос. Комсомольский; 27 - 29 августа 2020 г.; 48 особей - 28 самок и 20 самцов).
Все работы проводились в соответствии с «Международными руководящими принципами для биомедицинских исследований на животных» (International Guiding..., 2012). Кровь у черепах брали путем прокола хвостовой вены. После взятия крови все особи были возвращены в места отлова. Мазки крови (по два от каждой особи) готовили с помощью гематологического штапеля, высушивали на воздухе, затем фиксировали в спирто-эфирной смеси (1:1). Зафиксированные мазки хранили до окрашивания при комнатной температуре. Мазки окрашивали в течение 20 мин красителем Гимза азур-эозин по Романовскому (10-12 - кратный раствор (фирма «Биолот», Россия), приготовленном на фосфатном буфере (рН 6.8 - 7.2). Готовые мазки просматривали на микроскопе Meiji Techno серии МТ 4000 с иммерсией, при увеличении x1500 («Meiji Techno», Япония) с дифференцированным подсчётом лейкоцитов (Соколина и др., 1997; Alleman et al., 1992). С учетом морфологических особенностей определяли пять типов лейкоцитарных клеток (в %): гранулоциты (гетерофилы, базофилы, эозинофилы) и агранулоциты (моноциты, лимфоциты). Цифровые изображения препаратов выполняли камерой Vision САМ («Vision», Япония) для тринокулярного микроскопа Meiju Techno с использованием интегрированного адаптера и разъема С-mount (увеличение x1500).
На основании лейкоцитарной формулы крови рассчитали интегральные лейкоцитарные индексы в относительных единицах:
- индекс сдвига лейкоцитов, ИСЛ = Х гранулоцитов / Хагранулоцитов;
- индекс соотношения лимфоцитов и эозинофилов, ИСЛЭ=Л/Э;
- индекс соотношения гетерофилов и эозинофилов, ИСГЭ = Г/Э;
- лимфоцитарно-гранулоцитарный индекс, ИЛГ=Л«10/Э+Г+Б;
- индекс соотношения гетерофилов и лимфоцитов, ИСГЛ=Г/Л,
где Л - лимфоциты, Э - эозинофилы, Г - гетерофилы, Б - базофилы.
Измеряли длину карапакса (в мм) черепах по его прямой средней линии от переднего края загривкового щитка до заднего конца шва между надхвостовыми щитками штангенциркулем.
Данные сравнивали методами непараметрической статистики с расчетом критериев: Краске-ла-Уоллиса (H) (при множественном сравнении независимых групп по одному признаку), Данна (D) (множественный критерий при по-парном сравнении групп), Манна - Уитни (u) при сравнении двух групп в пакете прикладных программ «Статистика», критерием z при сравнении долей. За величину статистической значимости принимали а = 0.05.
РЕЗУЛЬТАТЫ И ИХ ОБСУЖДЕНИЕ
Морфологическую дифференциацию лейкоцитарных клеток проводили на основе ранее опубликованных описаний (Соколина и др., 1997; Alleman et al., 1992; Campbell, 2006; Metin et al., 2006; Perpinan, Sanchez, 2009; Cicek et al., 2015 и др.). К гранулоцитам относили гетерофилы, эозинофилы и базофилы. Наиболее крупными гранулоцитами являлись гетерофилы. Они имели одно темноокрашенное ядро овальной или круглой формы, расположенное эксцентрически. Цитоплазма (за исключением области вокруг ядра) окрашивалась от бледно-сиреневого цвета до оранжевого и содержала в различном количестве овальные или веретеновидные гранулы разного размера.
Эозинофилы были представлены крупными клетками с эксцентрически расположенным ядром овальной или эллипсовидной формы. Вся цитоплазма в клетке заполнена круглыми, одинаково окрашивающимися эозинофильными гранулами. По сравнению с гранулами гетерофилов гранулы эозинофилов окрашивались слабее.
Базофилы представляли собой круглые клетки среднего размера. Ядро круглое, располагалось в центре клетки, имело однородный темный хроматин. Крупные округлые гранулы окрашивались с разной интенсивностью и часто полностью скрывали ядро.
Среди агранулоцитов дифференцировали два типа клеток: моноциты и лимфоциты. Моноциты - крупные округлые клетки. Ядро большое дольчатое, имело светлый хроматин. Цитоплазма серо-голубая, часто с мелкими гранулами. Лимфоциты были представлены клетками разного размера. В центре малых лимфоцитов располагалось темно-синее интенсивно окрашенное ядро, окруженное небольшой зоной синей цитоплазмы. В крупных лимфоцитах круглое ядро было локализовано в определенной области клетки, цитоплазма бледно-голубого цвета занимала больший объем.
Преобладающими клетками в периферической крови болотных черепах из Оренбургской области являлись лимфоциты. Среди гранулоцитов доминировали гетерофилы. Статистически значимых половых различий в лейкоцитарном составе периферической крови этой выборки не выявлено (табл. 1).
Таблица 1. Сравнительный анализ лейкоцитарного состава периферической крови самцов и самок Emys orbicularis из Оренбургской области
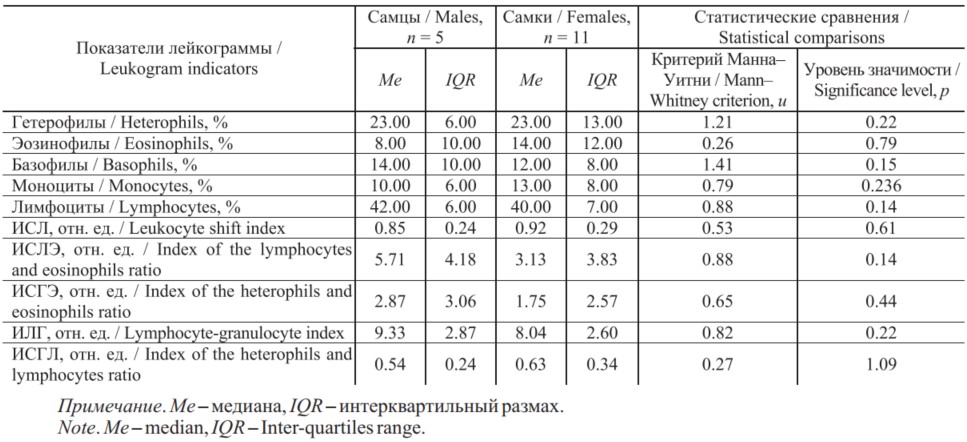
Отсутствие различий в количественных показателях формулы крови и интегральных лейкоцитарных индексах самцов и самок свидетельствовало о сопоставимом уровне воздействия и идентичности физиологических механизмов адаптации, протекающих в организме болотных черепах оренбургской выборки.
В периферической крови болотных черепах из Астраханской области доминирующими клетками также являлись малые и большие лимфоциты. Однако среди гранулоцитов в крови самок и самцов преобладали базофилы. Анализ лейкоцитарных формул выявил внутривидовые межполовые различия, проявляющиеся в повышенном содержание моноцитов в крови самцов по сравнению с самками (u= 3.13, р= 0.001) (табл. 2). Моноциты являются крупными мононуклеарными клетками, выполняют фагоцитирующую, антигенпрезентирующую функции, продуцируют эндогенные регуляторы иммунного ответа (Coico et al., 2003). Полученные результаты свидетельствовали об активации естественного иммунитета самцов астраханской выборки. Статистически значимых различий по количественному содержанию в крови гранулоцитов и интегральным лейкоцитарным индексам между самками и самцами астраханской выборки не обнаружено.
Можно заметить, что средняя длина карапакса самок (156.7±8.93 мм) и самцов (154.0±6.06 мм) из оренбургской выборки статистически значимо не различались (u = 0.39, р = 0.69), а в астраханской выборке по средней длине карапакса самки (130.0±6.73 мм) были мельче (u = 2.45, р = 0.01) самцов (154.0±2.50 мм). Межполовые различия подтверждались и непараметрическим критерием корреляции (ассоциации) Спирмана. Умеренную ассоциацию с качественным признаком (полом особи) обнаружили моноциты (r = 0.34, R2 = 0.12, p = 0.0008) и средняя длина карапакса (r = 0.35, R2 = 0.12, p = 0.0007). Самцы из двух выборок не различались как по размерам (u = 0.08, р = 1.00), так и доле моноцитов в лейкограмме (u = 0.79, р = 0.99).
Колебание физиологических показателей отдельных компонентов иммуногематологической системы при онтогенезе и под воздействием разнообразных факторов позволяет сохранить функциональную целостность всего организма эктотермных животных как сложной биологической системы в постоянно изменяющихся условиях среды. Поэтому при анализе иммуногематологических параметров особое внимание следует обратить на системные показатели, включающие результат взаимодействия нескольких компонентов. В этой связи представлялось интересным изучить взаимозависимость между морфологическими и гематологическими показателями болотных черепах. Методом регрессионного анализа показана статистически значимая корреляция количества эозинофилов, моноцитов и лимфоцитов в периферической крови с размерами тела черепах (табл. 3).
Таблица 2. Сравнительный анализ лейкоцитарного состава периферической крови самцов и самок Emys orbicularis из Астраханской области
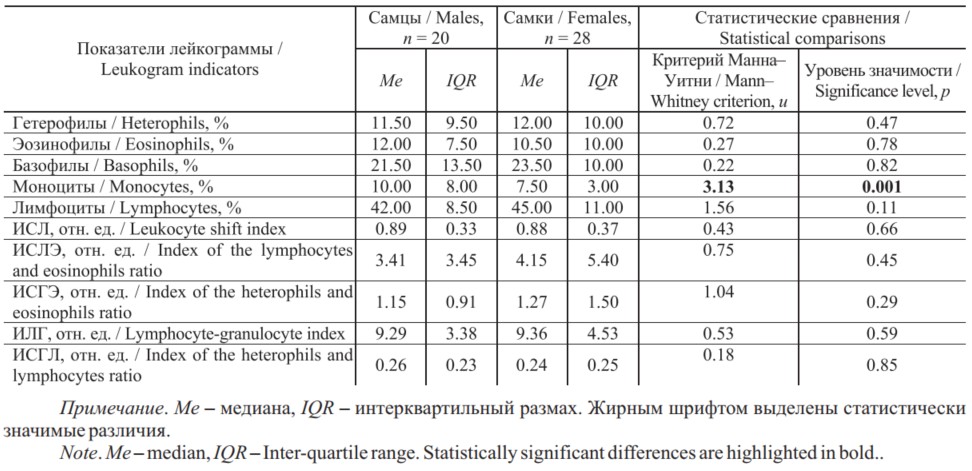
Таблица 3. Связь количественныхпоказателей формулы крови с размерами тела Emys orbicularis
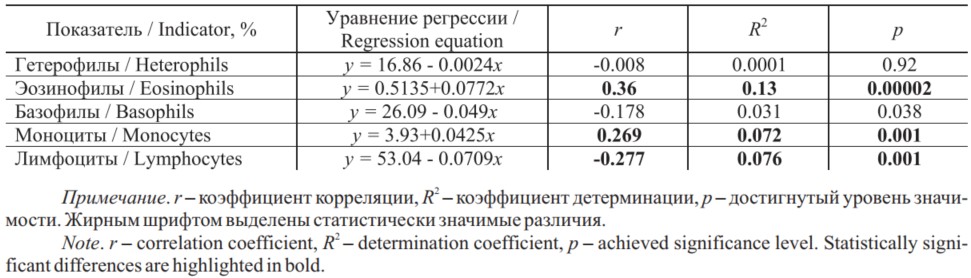
В свою очередь, анализ полученных зависимостей показал, что примерно на 13% (показатель детерминации R2 = 0.13) дисперсия содержания эозинофилов в крови объясняется дисперсией размера тела болотных черепах. Для моноцитов и лимфоцитов этот показатель детерминации был еще меньше: 0.072 и 0.076 соответственно, и только на 7% дисперсия содержания в крови агранулоцитов объяснялась размерами тела. Полученный результат показывает, что при анализе и оценивании адаптационных возможностей организма наряду с простыми детализированными показателями полезно иметь в виду и зависимости одного признака от одного или нескольких других признаков (количественных или качественных).
Сравнительный анализ лейкоцитарного профиля болотных черепах из разных популяций выявил различия по содержанию как гранулоцитов, так и агранулоцитов. Самцы оренбургской выборки отличались от самцов астраханской выборки повышенной долей гетерофилов и пониженным содержанием базофилов. Самки обеих выборок различались по всем показателям формулы крови, кроме эозинофилов, доля которых была одинакова. В периферической крови самок оренбургской выборки выявлено более высокое содержание гетерофилов, моноцитов и пониженное содержание базофилов и лимфоцитов по сравнению с самками астраханской выборки (табл. 4).
Лейкоцитарные клетки периферической крови рептилий ответственны за проявление как реакций естественного иммунитета (гетерофилы, базофилы и эозинофилы), так и адаптивного иммунного ответа (лимфоциты). По изменениям соотношения разных типов лейкоцитов под воздействием внутренних или внешних факторов судят о состоянии и функциональной активности иммунного реагирования организма (Arican, Cicek, 2014). Полученные результаты свидетельствовали об активации естественного иммунитета самок и самцов оренбургской выборки по сравнению с самками астраханской выборки. Известно, что невысокое содержание базофилов в периферической крови повышается при поступлении в организм дополнительных антигенов. На мембране этих клеток содержатся антиген-специфические рецепторы, активация которых приводит к дегрануляции базофилов и выбросу гистамина в ответ на поступление антигена в организм, что вызывает формирование воспалительной реакции и реализацию основных функций врожденного иммунитета рептилий. Процесс зависит от концентрации антигена и температуры (Sypek et al., 1984). Повышенная доля базофилов в крови самок и самцов астраханской выборки могла быть вызвана разными причинами: загрязнением среды обитания, заболеваниями или кровепаразитарными инвазиями (Васильев, 2016).
Таблица 4. Сравнительный анализ лейкоцитарного состава периферической крови самцов и самок Emys orbicularis в выборках из двух популяций
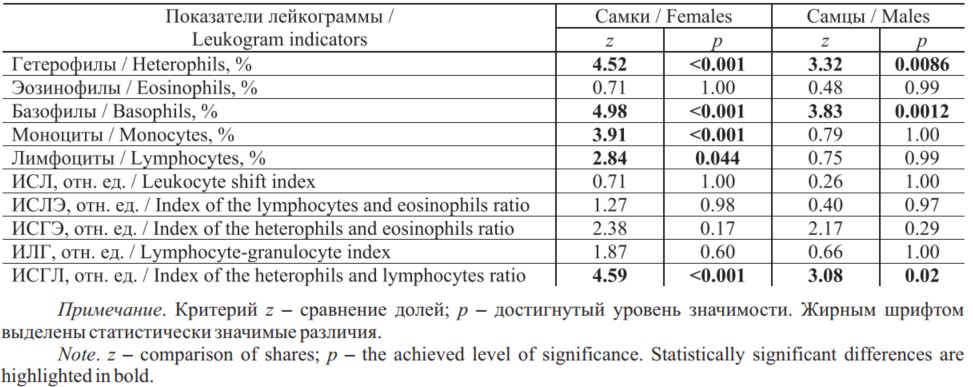
Информативными интегральными показателями реактивности организма являются интегральные индексы: ИСЛ, ИСЛЭ, ИСГЭ, ИЛГ и ИСГЛ. Так, известно, что увеличение соотношения гетерофилов к лимфоцитам наряду с другими изменениями в формуле крови свидетельствует о развитии стрессорных реакций в организме животных (Davis et al., 2008). Более высокое значение индекса ИСГЛ у особей оренбургской выборки может свидетельствовать о дополнительном стрессовом воздействии на болотных черепах.
Известно, что различные характеристики окружающей среды (температура, скорость течения, рН среды и т. д.) могут повлиять на возникновение, распространенность и интенсивность заболеваний и инвазий животных (Marcogliese, Cone, 1997). При проведении гематологического анализа в периферической крови черепах обеих выборок были выявлены измененные эритроциты удлиненной формы с эксцентрическимия драми. В цитоплазме этих эритроцитов обнаруживались гемопаразиты. По внутриклеточному расположению, внешнему виду, форме и морфологии гемопаразиты соответствовали роду Haemogregarina из семейства Haemogregarinidae (Мкртчян, 1966; Telford, 2009). Хорошо известно, что представители данного рода инфицируют рептилий в качестве промежуточных хозяев (Siddall, Desser, 1992; Ozvegy et al., 2015), и различные стадии жизненного цикла гемопаразита развиваются в эритроцитах периферической крови черепах, обитающих в пресных водах (Мкртчян, 1966; Olsen, 1986; Ozvegyetal., 2015) (рис. 1).
Сравнительный анализ распространенности гемопаразитов в обеих выборках показал, что в астраханской выборке было больше незараженных самок. Отметим, тем не менее, что в литературе имеются данные о преимущественном поражении гемопаразитами самок по сравнению с самцами (Molla et al., 2013). В целом по выборке доли зараженных и незараженных гемопаразитами особей статистически значимо не различались. В оренбургской выборке распространённость Haemogregarina sp. среди самок и самцов была одинаковой, но при этом в целом по выборке доля зараженных особей оказалась выше по сравнению с астраханскими черепахами (табл. 5).
Вопрос об изменении гематологических по казателей у рептилий при инвазии остается открытым, что связано, в первую очередь, с отсутствием показателей условной нормы для различных видов в зависимости от возрастных, половых и сезонных особенностей. Анализ литературных сведений показывает, что болотные черепахи, инфицированные Haemogregarina stepanowi, имели более низкие значения гематокрита, гемоглобина, эритроцитов по сравнению с незараженными особями (Ozvegy et al., 2015). Ряд авторов отмечают изменение формы и размера эритроцитов при инвазиях (Мкртчян, 1966; Хайрутдинов, Соколина, 2010). Имеются данные о повышении в крови содержания плазматических клеток, гетерофилов, азурофилов и лимфоцитов ящериц, в крови которых зафиксированы паразиты (Хайрутдинов, Соколина, 2010).
Рис. 1. Haemogregarina sp.: U-образной формы в эритроците болотной черепахи, хорошо видно эксцентрично смещенное ядро эритроцита
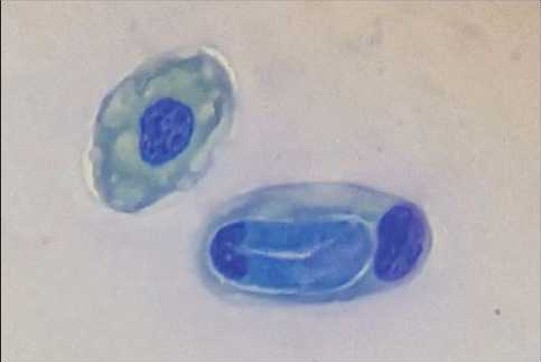
Таблица 5. Встречаемость гемопаразитов в эритроцитах Emys orbicularis в выборках из двух популяций
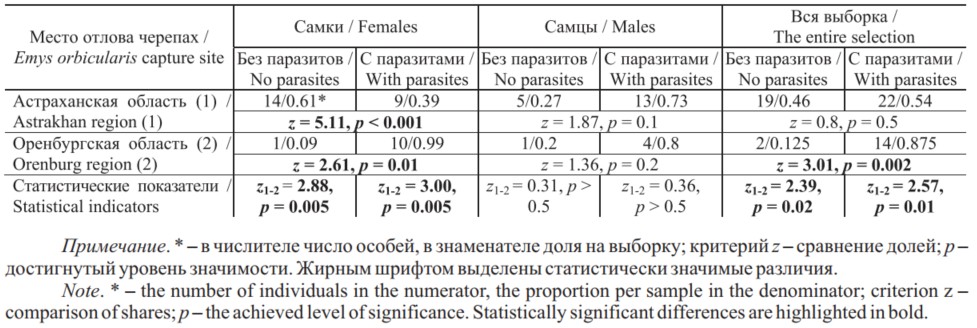
По нашим данным, в астраханской выборке лейкоцитарный профиль самцов болотных черепах с инвазией и без инвазии не различался. Напротив, в лейкограммах самок болотных черепах с гемопаразитами в эритроцитах (9 особей) установлено повышенное содержание моноцитов (u = 2.67, р= 0.007) и гетерофилов (u= 2.02, р= 0.04) по сравнению с лейкограммами самок без гемопаразитов (14 особей). Высокий показатель индекса ИСГЛ для самок с гемопаразитами (Me = 0.30, IQR = 0.20) ( u= 2.34, р= 0.01) обусловливался приростом в периферической крови доли гетерофилов.
В целом по выборке астраханских черепах лейкоцитарные профили зараженных и незараженных особей различались содержанием гетерофилов (u= 2.08, p= 0.03), моноцитов (u= 2.63, p = 0.008) и лимфоцитов (u= 2.34, p= 0.018). В крови особей с гемопаразитами выявлено повышенное содержание гетерофилов, моноцитов и снижение доли лимфоцитов (рис. 2).
Рис. 2. Изменения лейкоцитарного состава крови Emys orbicularis астраханской выборки при наличии в эритроцитах гемопаразитов: 1 - без гемопаразитов, 2 - с гемопаразитами
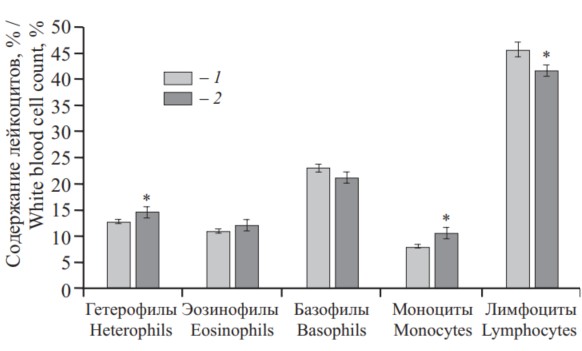
Таким образом, наличие гемопаразитов в эритроцитах сопровождалось изменением показателей крови болотных черепах. При этом в крови уменьшалось содержание лимфоцитов и увеличивалось количество гетерофилов и моноцитов. Картина крови является симптоматическим отражением патологического процесса, протекающего в организме животного при инвазии гемопаразитами, и характеризует биологические взаимоотношения паразит - хозяин. Лейкоцитарные показатели крови, в первую очередь гетерофилы и лимфоциты, указывают на иммунную реактивность организма хозяина, которая находится под влиянием многочислен ных факторов внешней среды и всевоз можных патогенных агентов. Развиваясь в организме болотных черепах, гемопаразиты как биологический раздражитель оказывают на него стрессорное воздействие, формы которого разнообразны и зависят от совокупности биологических и физиологических процессов, происходящих при инвазионных болезнях, а также от защитных свойств и ответных реакций организма хозяина. Гематологическим параметром развития стресса (Davis et al., 2008) у болотных черепах с гемопаразитами в эритроцитах крови можно считать и повышенное значение интегрального лейкоцитарного индекса ИСГЛ (u= 2.66, p= 0.007) по сравнению с особями без гемопаразитов.
ЗАКЛЮЧЕНИЕ
Сутью аутэкологических исследований является выявление факторов и механизмов функционирования и адаптации организмов в постоянно изменяющихся условиях среды на уровне видов. Такой подход необходим как для изучения разных популяций одного вида, так и экосистем, элементами которых являются виды. В адаптации организмов к условиям среды, возникающих при воздействии экстремальных факторов, в том числе и при инвазионных болезнях, непосредственно участвует система крови, обеспечивающая важнейшие гомеостатические функции организма. Несмотря на имеющиеся литературные данных по изучению гематологических и биохимических показателей, практически отсутствуют исследования по сравнительному анализу адаптивных реакций системы крови и различий со стороны иммунной системы у болотных черепах, обитающих в близких и качественно различных условиях среды.
Преобладающими лейкоцитарными клетками в периферической крови болотных черепах являлись лимфоциты (40 - 45%). Среди гранулоцитов доминировали гетерофилы (оренбургская выборка), обеспечивающие реакции неспецифической естественной защитной системы организма, или базофилы (астраханская выборка), обладающие высокоспецифичными функциями, связанными с активным высвобождением гистамина при поступлении антигенов. У болотных черепах оренбургской выборки межполовых различий по лейкоцитарным показателям не выявлено. Периферическая кровь самцов болотных черепах по сравнению с самками (астраханская выборка) характеризовалась повышенным содержанием моноцитов, что иллюстрировало активацию естественного иммунитета.
Анализ лейкоцитарного состава крови болотных черепах выявил количественно-качественные изменения в иммунологических показателях при инвазии гемопаразитами. При этом снижалась специфическая иммунная реакция (содержание лимфоцитов), что компенсировалось повышением неспецифической защитной системы (содержание гетерофилов). Поддержание иммунологической реактивности организма болотных черепах в условиях инвазии определялось функциональной активностью гетерофилов, что подтверждалось более высоким значением индекса ИСГЛ.
Полученные данные расширяют наши представления о закономерностях изменения общей реактивности организма болотных черепах и путях адаптации на уровне системы крови. Хорошо известно, что большинство изменений в организме, если не напрямую детерминированы влиянием иммунологических факторов, то являются иммунно-опосредованными (Галактионов, 2004). Иммунологические взаимоотношения организма со средой обитания являются результатом воздействия, с одной стороны, антигенов, а с другой - распознавания и реагирования на эти антигены иммунной системы организма. Любые воздействия, изменяющие иммунологическую реактивность организма животных, в том числе инвазионные болезни, могут нарушать формирование сложных механизмов обеспечения гомеостатического равновесия между организмом и средой обитания.
Благодарности
Авторы признательны кандидату биологических наук, доценту, старшему научному сотруднику Волжско-Камского государственного природного биосферного заповедника Алексею Владиленовичу Павлову за консультации при определении гемопаразитов в эритроцитах болотных черепах.