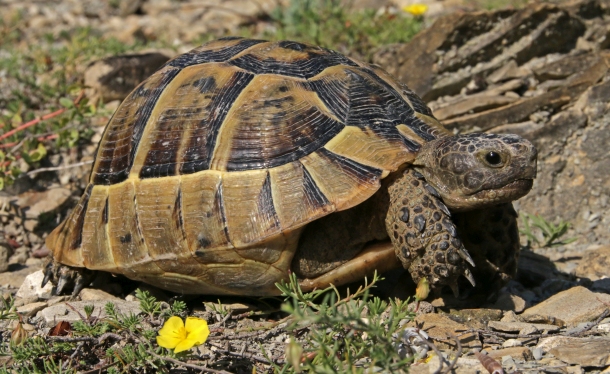
Большинство авторов (Wermuth, Mertens, 1961; Funl Vancea, 1961; Obst, Meusel, 1972; Honegger, 1978; Pritcharc 1979) считают, что ареал T. g. ibera располагается в пределах: Восточных Балкан (районы к югу и востоку от Дуная: Румыния, Болгария, Македония в Югославии, северо-восточная Греция, европейская часть Турции, большая часть Малой Азии, юго-восточное Закавказье, восточный Кавказ и сопредельный Иран). Весь этот ареал сплошной; лишь узкая полоса причерноморского побережья Кавказа, где в настояще время сохраняется разреженная популяция среднеземноморской черепахи, оторвана от основной части ареала значительными территориями, непригодными для обитания рассматримого вида. Эти территории представлены обширными пространствами моря, широкими долинами с полноводными реками, обширными заболоченными районами, горными хребтами выще 1000 м над уровнем моря, которые являются непреодолимыми преградами для расселения сухопутных черепах, по крайней мере в историческое время. Между тем история возникновения изолированного участка ареала до сих цор не выяснена. Наиболее вероятной является точка зрения, согласно которой тектонические процессы привели к нарушению (разрыву) в четвертичном периоде сухопутных связей "мостов" между Балканами, Крымом и Кавказом (или погружению Понтиды в пучину Черного моря), существовавших в неогене (Пузанов, 1927а, 1929, 1949; Малеев, 1940; Ковалевский, 1966; Рубцов, 1980 и др.). Изложенное хорошо согласуется с современными представлениями о новейшем Нормировании Черноморской впадины (Герасимов, 1980). Палеонтологические данные свидетельствуют, что черепахи рода Testudo были достаточно широко представлены в фауне Крыма, но вымерли в первой половине четвертичного периода (Хозацкий, 1947, 1948, 1957; Щербак, 1966). Однако один 3 видов этого рода сохранился на черноморском побережье Кавказа в природных условиях, близких к таковым Южного Крыма.
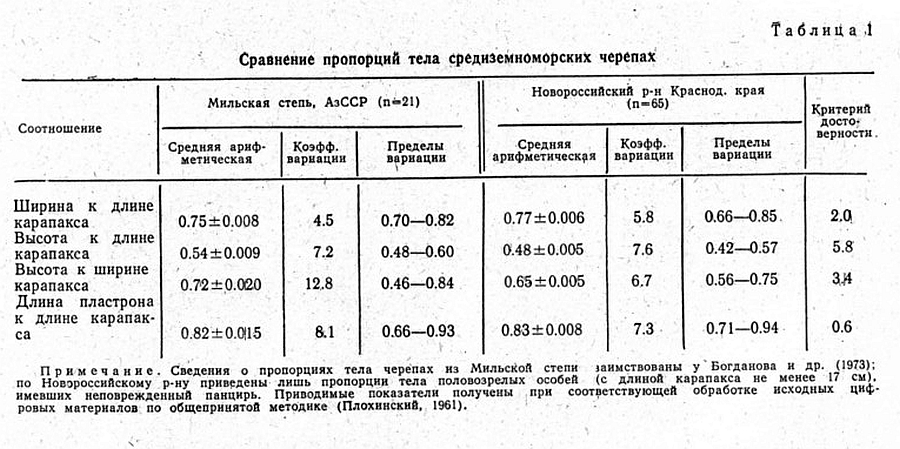
В условиях длительной изоляции на черноморском побережье Кавказа сформировалась особая форма, генетически не связанная с популяциями Восточного Кавказа и юго-восточного Закавказья. Таким образом, «черноморская популяция» средиземноморской черепахи — географический изолят, оторый фенотипически заметно отличается от особей Т. g. bera из других мест ареала. Наши наблюдения, а также анализ литературных данных показывают, что на черноморском юбережье Кавказа обитают черепахи, ведущие исключительно лесной образ жизни; и лишь в период размножения перемещаются в редколесья, на поляны и лесные опушки; тогда как в Закавказье и на восточном Кавказе Т. g. ibera встречаются в основном на открытых пространствах (степях, полупустынях, редколесьях) и в низменных лесах (Кесслер, 1878; Никольский, 1913; Пузанов, 19276; Соболевский, 1929; Банников, 1951; Даль, 1954; Верещагин, 1958; Терентьев, 4961; Funh, Vancea, 1961; Мусхелишвйли, 1970; Богданов и др., 1973; Банников и др., 1977; Алекперов, 1978). Внешних морфологических отличий можно указать на чительное преобладание в окраске панциря взрослых черноморских черепах желтого и темного буро-зеленого цветов и его более уплощенную форму. Сравнение экстерьерных признаков черноморской формы с черепахами из некоторый других частей ареала Т. graeca в пределах Советского Союза свидетельствует о наличии статистически достоверных отличий в пропорциях тела между ними (табл. 1). Однако обсуждать вопрос, о каком именно таксономическом ранге черноморской формы, говорят имеющиеся отличия, без привлечения и рассмотрения дополнительных данных (лежащих за пределами темы нашей статьи), невозможно. Учитывая изложенное, мы этого вопроса здесь касаться не будем, подчеркнем лишь то, что черноморскую форму, по-видимому, нельзя идентифицировать как Т. g. ibera.
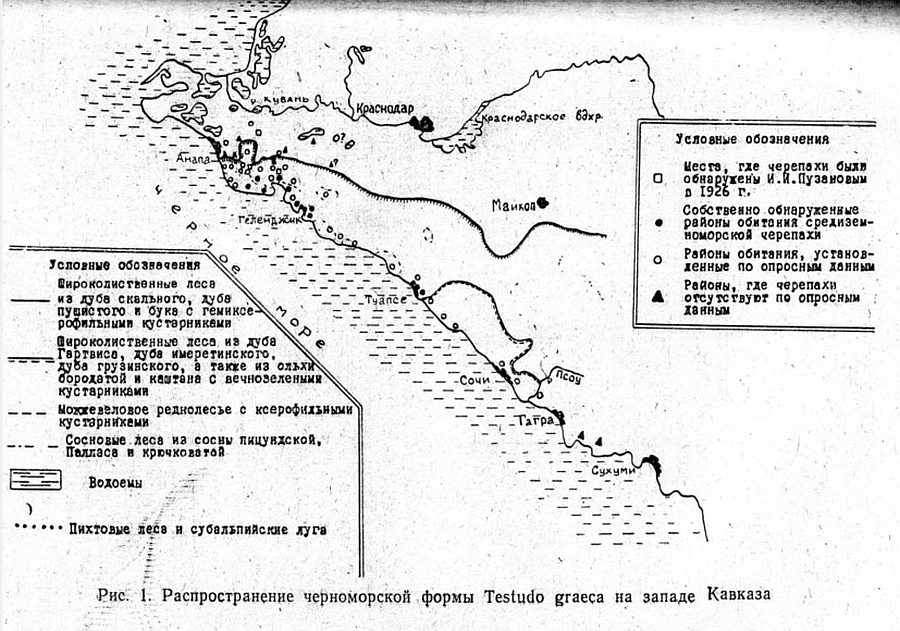
Выясняя современное распространение средиземноморской черепахи на черноморском побережье Кавказа *, мы пришли к выводу, что ни одна сводка не определяет достаточно точно реальные границы ареала (Никольский, 1913; Терентьев и Чернов, 1949; Верещагин, 1958, Банников, Даревский, Рустамов, 1971; Банников, Даревский и др., 1977; Красная книга СССР, 1978). Собственные наблюдения, а также опрос местного населения, главным образом работников лесхозов — от лесников и обходчиков до руководителей различного ранга, показывают, что на севере и западе граница мало изменилась со времен поездки И. И. Пузанова в 1926 г. I (Пузанов, 1927б). Она проходит от Анапы на северо-востоку к станице Варениковской и, не доходя до нее, поворачивает на поселки Нижнебаканский и Новоукраинский, но не доходит до Абинска, а поворачивает на юг, не заходя далее на северный склон отрогов Главного Кавказского хребта. Есть сведения о встречах с черепахами в сохранившихся массивах леса между Варнавинским и Крюковским водохранилищами вплоть до левобережья р. Кубань. Далее граница идет по макросклону, обращенному к морю, не поднимаясь выше 800 м, а за Геленджиком и далее, опускаясь еще ниже (и ближе к прибрежной полосе), минует лесные склоны с нетронутыми массивами из дуба пушистого, скального и буко-грабовые леса. Здесь и дадее к югу черепахи встречаются, главным образом, среди разреженных древостоев и кустарников, на больших полянах, луговинах и остепненньх склонах, а также в окрестностях культурного ландшафта. Есть сведения об обитании черепах на поросших деградирующих лесом склонах, окружающих Туапсе, в районе Лазаревское и Сочи-Хоста (рис. 1). Остается до сих пор неясны вопрос о крайнем южном пределе распространения этих peптилий в Абхазии. Данные, любезно предоставленные на Л. И. Хозацким, говорят о том, что черепахи в 1937 г. встречались в районе Пицунды и Сухуми. Н. К. Верещагин (1958) а вслед за ним А. Г. Банников, И. С. Даревский и др. (1977) указывают пределом Пицунду. Есть данные о черепахах в Пицундо-Мюссерском заповеднике, но встречаются они там очень редко (устное сообщение Б. С. Туниева). Один из авторов, дважды бывая в Пицунде в сентябре в конце 70-х годов и исследуя ее окрестности, никаких следов, могущих указать на присутствие там черепах, не нашел. Опрос в Гудаутском лесхозе в сентябре 1981 г. также дал отрицательные результаты.
* Систематический тщательный сбор материала, использованного в статье, осуществлялся с марта по октябрь 1981 г., а эпизодический — с мая по октябрь 1973, 1974, 1975 г. Работа проводилась в основном в Новороссийском, а также в Геленджикском и Анапском р-нах Краснодарского края. В сборе материала, цроме авторов, принимали участие также сотрудники проблемной биологической лаборатории Московского госпединститута Г. И. Френкина и В. И. Павленков, которым авторы приносят свою искреннюю благодарность.
Весной и в начале лета, в период наибольшей активности черепах, нами проводились исследования по выяснению биотопического размещения популяции и определение ее численности на маршрутах и площадях. В это время (отыскивание противоположного пола, спаривание) наиболее многочисленны черепахи на больших лесных полянах, в редколесьях и кустарниковых зарослях («шибляке») в полосе 50—300 м над уровнем моря, растительный покров здесь слагается из низкорослого дуба, пушистого и скального, и трех видов можжевельника (Juniperus sabina, J. excelsa J. foetidissima), грабинника, держи-дерева, сумаха, фисташки и низкорослого жасмина (Jasminum fruticans), который чаще всего в эту пору служит черепахам укрытием. В травостое преобладает горно-степная и горно-луговая растительность, которая на отдельных участках достигает значительной загущенности и высоты (до пояса), в других — изрежена, низкоросла; наконец, она может уступать место эрродированным участкам с выходами материнских пород и каменистыми осыпями. Такие биотопы обычно находятся на обращенных к морю склонах с крутизной в 15°—20°. Они (склоны) изрезаны балками с пересохшими руслами весенних потоков. Склоны балок, как правило, покрыты более густым лесом с преобладанием грабинника и лианами. Средняя, плотность черепах составляет здесь весной около пяти особей на 10 га (мин: 1—3, мак: 7—9). В лесных биотопах (растительный покров которых слагает в древесном ярусе грабинник и дуб пушистый с ясенем, в подлеске — кизил, сумах, можжевельник казацкий, а из лиан преобладает плющ; разреженный травянистый покров - горно-луговая растительность с дубравными элементами и первоцветами; значительно развита подстилка) средняя плотность черепах составляет 2—4 особи на 10 га. Однако здесь нет такого равномерного распределения как в предыдущем биотопе: черепахи встречаются преимущественно на склоне юго-западной экспозиции, отдают они предпочтение и небольшим прогалинам, просекам, лесным дорогам и тропинкам. Иногда они могут концентрироваться весной в весьма значительных количествах: по 3—4 особи на расширении лесной дороги площадью в 0,1 га или на просеке, проходящей по каменистому грунту и в отдельных местах густо поросшей клевером, где их можно было насчитать на 3-километровом маршруте от 5 до 12 особен в зависимости от времени дня. Черепахи встречались и неподалеку от деревень и поселков, но ни разу не были замечены нами на виноградниках. Отсутствуют они также на полянах и лугах, часто посещаемых скотом. Учитывая все изложенное, можно с большой долей уверенности утверждать, экстраполируя наши данные, что в треугольнике от Анапы до Нижнебаканского и Геленджика (в основании которого находится морское побережье), т. е. там, где наиболее распространены вышеописанные биотопы, плотность черепах колеблется от 6 до 12 особей на км2. Располагая картосхемами лесоустройства для данного района, можно дать приблизительную оценку численности этих рептилий для территории, где сосредоточена наибольшая часть популяции. Если при этом учесть, что на вышеочерченной территории, на которую экстраполируются наши дайные, имеются и площади, на которых по целому. ряду причин черепахи встречаться не могут, то за осно-ву следует взять плотность в 5—8 особей на 1 км2. Таким образом, на вышеобозначенной территории площадью в 2000 км2 обитает 12—14 тыс. черепах. Как уже отмечалось, эта территория наиболее обширная и наиболее благоприятная в черноморской части ареала, поэтому приблизительная оценка численности всей черноморской формы черепахи оставит около 25—30 тыс. особей *.
*Поскольку учеты велись преимущественно весной — когда были активны и попадались исключительно участвовавшие в размножении особи — приведенные цифры характеризуют численность половозрелой части популяции.
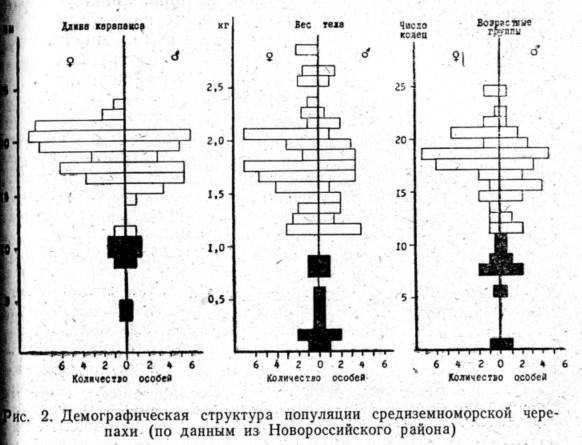
В поддержании достаточно высокой численности особей оптимальной плотности популяции важное значение имеет ее структура. Демографическая структура популяции черепах, изучавшихся нами в Новороссийском р-не, весьма своеобразна (рис. 2). Размеры, вес и число колец рисунка на роговых щитках карапакса (по которым с известной степенью точности обмеренные черепахи относились к той или иной озрастной группе) убедительно показали, что подавляющее большинство встреченных с апреля по сентябрь (включиельно) особей принадлежит к взрослым черепахам (табл. 2). Соотношение полов половозрелых особей близко к соотношению 1:1. Минимальные и максимальные биометрические показатели разных особей лежали в градиенте: 3—24 см, 0,02—2,9 кг, 1—25 «годовых колец».
Незначительная доля молодых особей в выборке чаще всего свидетельствует о неблагоприятных для популяции тенденциях в ее динамике. Поэтому, насколько позволяет собранный материал, мы попытались выяснить факторы, влияющие на динамику численности исследованных черепах.
Прямые наблюдения, опросные сведения, анализ литературных источников и метеоданных показывают, что после зимовки особи, обитающие между Анапой и Геленджиком, обычно выходят в конце марта — начале апреля, а вновь уходят на зимовку в конце сентября—октябре. Таким образом, активный период жизни черепах составляет около 180—200 дней. Сразу же после зимней спячки черепахи приступают к спариванию, которое может длиться у отдельных, пар до середины — конца июня. Первые кладки отмечены в конце мая — первых числах июня, а последние, по-видимому, бывают в конце июня—июле. Весь период инкубации продолжается примерно 80 дней, несколько удлиняясь или укорачиваясь в зависимости от погоды. Сеголетки начинают появляться на дневной поверхности в конце июля, их отрождение продолжается в августе и до середины сентября. Однако какая-то часть черепашек, возможно, появляется на дневной поверхности только во второй половине мая следующего года; судя по их размерам и весу (L — 33 мм; S — 44 мм, Р — 21 г.), перезимовав под землей. Конечно, для уточнения приводимых дат достаточно было бы вскрыть несколько десятков черепах. Однако, учитывая крайнюю разреженность популяции и то, что вид занесен в Красную книгу СССР, мы считаем такой метод неприемлемым и недопустимым при изучении редких видов.
Мы не располагаем данными о динамике роста черепашек в первые месяцы жизни в природных условиях. Поэтому ниже приводятся соответствующие данные, полученные в Московском зоопарке. Здесь, две самки (L — 228 мм, Р — 2300 г, L — 208 мм, Р — 1729 г), отловленные 25 мая 1981 г. в Новороссийском р-не, в июне этого же года (8, 11, 21) отложили яйца в количестве 10 шт. Яйца были длиной 34,3—39 мм, шириной 29—32,2 мм и весом 19—21 г. Они были помещены в пластиковую коробку на «подушечки» из поролона, которые находились на постоянно влажной поролоновой прокладке. Коробка была накрыта стеклом, Оставлялось только небольшое отверстие для вентиляции. Влажность в коробке поддерживалась на уровне около 90%. Яйца инкубировались в термостате при 28—30°С в течение 66—93 дней. Вылупилось четыре черепашки, остальные яйца были неоплодотворенными. Вылупление начиналось с появления небольшого отверстия в яйце, после чего черепашка рассекала скорлупу по окружности яйца примерно на 1/3 его, в результате из образовавшегося отверстия появлялись лапы, в таком положении черепашки оставались в яйце приблизительно около 8 часов. Затем черепашка выходила из яйца, полностью разламывая скорлупу.
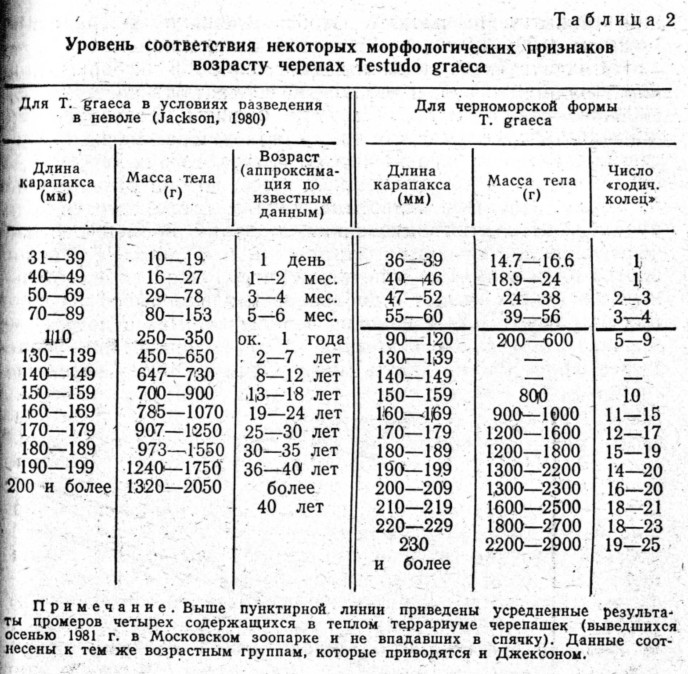
Сразу после вылупления черепашки имели глубокую поперечную складку на пластроне на границе грудных и брюшных щитков и пупочную щель, расположенную продольно, размерами 11х7 мм. В течение двух-четырех часов складка расправляется. Черепашата были помещены в террариум размером 40X50X40 см, дно которого было покрыто опилками слоем 4 см. Температура под обогревом 30—32°С, в холодном углу 27—28°С. Первые 6 дней черепашата постоянно зарывались в опилки и были мало активны. В последующие дни активность черепашат возрастала и через месяц она достигла 6 часов (с 8 до 14 часов). С первого дня черепашкам предлагалась фруктово-овощная смесь, но они отказывались от корма. Питаться животные начали после того, как им предложили листья одуванчика, к этому времени возраст черепашек достиг соответственно 4,5 и 6 дней. Черепашки охотно пили воду. Раз в неделю они получали измельченных новорожденных мышат с добавлением глицерофосфата кальция из расчета 0,25 г на одну черепашку. Раз в неделю черепашки облучались кварцевой лампой мощностью 850 вт с расстояния 1 м по десять минут. Яйцевой зуб у черепашат резорбировался на 40—50 день*. Развитие протекало, по-видимому, в пределах нормы (рис. 3, табл. 2).
*Наблюдения за развитием сеголеток черепахи в неволе проведены описаны сотрудником Московского зоопарка В. Е. Фроловым, которому авторы приносят свою искреннюю благодарность за предоставленные данные.
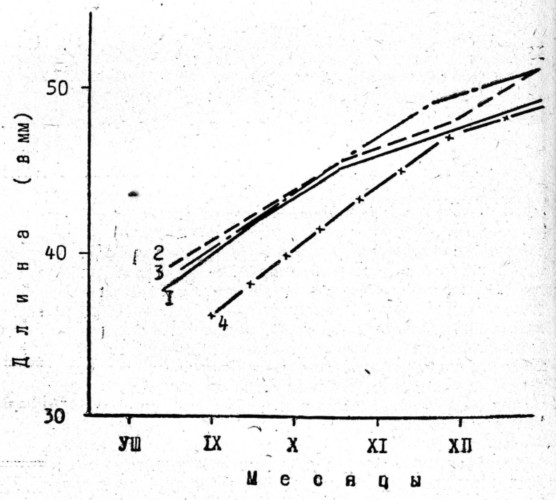
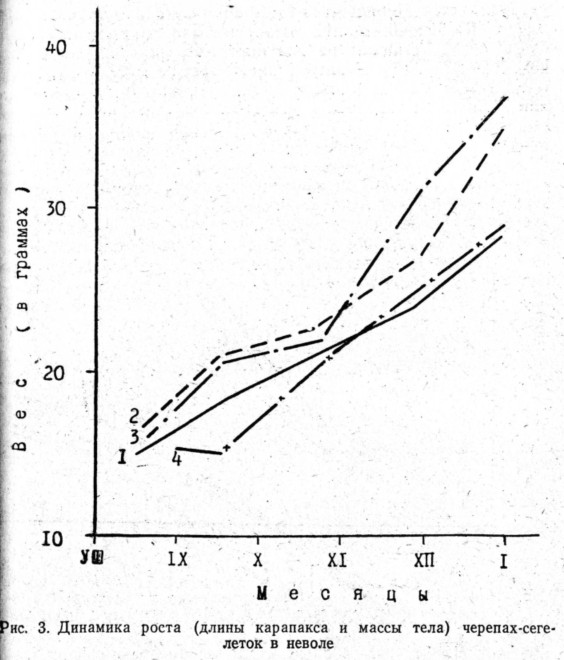
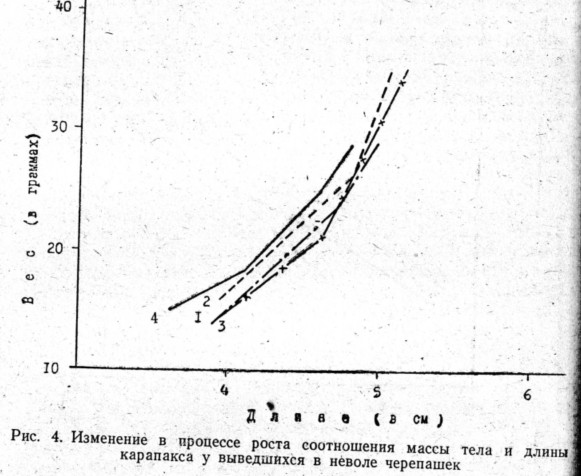
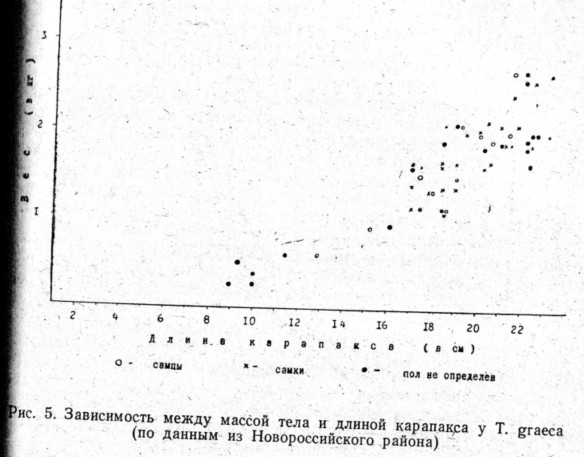
Динамика роста молодых и взрослых черепах довольно сходна, что вообще характерно для пойкилотермных животных (табл. 2, рис. 4 и 5). Сравнивая эти показатели с соотношением между весом и линейными размерами у взрослых черепах, можно видеть, что тенденция определенной зависимости сохраняется в течение всей жизни особей (рис. 5). Между тем, если у наших сеголеток отношение между массой и размерами совпадает более или менее с данными, полученными для Testudo graeca в условиях неволи в Англии (Jackson, 1980), то взрослые особи черноморской формы заметно превосходят их по величине.
Черепахи имеют исключительно дневную активность, которая колеблется по времени в зависимости от сезона и погоды. В целом весной и осенью черепахи наиболее активны в середине дня (с 8 до 15 часов по солнечному времени), летом — утром (с 6 до 10.30) и вечером (с 14.30 до 17). Однако как активные, так и неактивные особи встречаются почти все светлое время суток. Цикл суточной активности черепах полифазный: в зависимости от энергетических потребностей особь может, например, весной в середине дня греться под лучами солнца на поляне, наполовину зарывшись в родстилку около куста держи-дерева, или ползать, питаясь в густой траве на заброшенной лесной дороге, или же дремать, зарывшись в сухие прошлогодние листья в глубине леса.
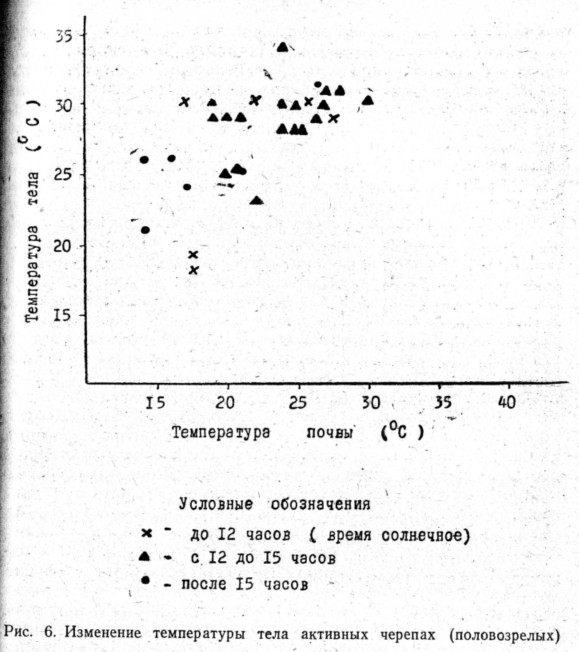
Таким образом, для каждой особи общая продолжительность суточной активности (когда особь питается, передвигается, роется в листьях и т. д.) составляет не более 10 часов. Черепахи, живущие в лесах горных склонов, обращенных к морю (т. е. на юг), начинают и заканчивают активный период в зависимости от освещенности склона прямыми солнечными лучами. На ночь и при неблагоприятных погодных гусловиях (дождь, слишком высокая дневная температура и т. п.) черепаха прячется в густой кустарник, норы и расщелины, пустоты под камнями и просто мощный слой лесной подстилки. У таких находящихся в неактивном состоянии черепах температура тела лишь немного выше, чем температура субстрата, в который они зарылись. В середине лета, в наиболее жаркие дневные часы, черепахи, очевидно, спасаются в таких местах от перегрева. Например, 6 сентября 1981 г., когда на южной опушке леса температура воздуха была +31°С, клоакальная температура зарывшейся в лесную подстилку под дубом в нескольких метрах от опушки черепахи была +28,5° (температура в подстилке +25,5°, на поверхности подстилки +26,8°). В другом случае соответствующие значения температур были: воздуха +32,8°С, тела черепахи +31,3°, подстилки под кустом граба, куда зарылась черепаха, +24°С, поверхности подстилки +26,5°.
Обычно клоакальная температура черепах несколько выше температуры на поверхности почвы и в период двигательной активности животных лежит в интервалах 20—32°С (рис. 6.). Следует обратить внимание, что остывание тела в конце активного периода — процесс, протекающий более однотипно у всех особей, чем начало разогрева, который определяется индивидуальным началом двигательной активности.
По нашим наблюдениям,- 45% пищи (по встречаемости) составляют бобовые — чина (Lathyrus aphaca), клевер (Trifolium sp.), вязель (Cor&nilla sp.), астрагал (Astragalus sp.); довольно часто употребляются сложноцветные (16%), особенно одуванчик (Taraxacum sp.) и реже цикорий (Cichorium intybus); остальные поедаемые черепахами растения более или менее распределяются среди мареновых — подмаренник (Galium sp.), норичниковых — марьянник (Melampirum cau- casicum), заразиховых — заразиха (Orobanche sp.), розоцветных. Довольно часто черепахи объедают листья нижних ветвей кустарников — держи-дерева (Paliurus Mill.) и изредка — жасмина (Jasminum fruticans). Нами не отмечено поедание черепахами животных кормов, однако состав экскрементов и охотное взятие животных кормов черепахами, привезенными в зоопарк, подтверждает указание многих авторов, что какую-то долю пищевого рациона составляет пища животного происхождения. Дефицит влаги черепахи могут возмещать не только через пищу, но и непосредственно, используя пресную воду. Так, в конце июля 1981 г., когда температура в тени днем была 30—33°С, отмечена некоторая концентрация черепах у непересохших водоемов, т. е. в местах, где в другое время они практически не встречались. При этом одна крупная особь, пойманная у ручья во время питья, вылила изо рта около 50 мл воды, когда ее перевернули на спину для промеров.
Особенности анатомического строения, форма и окраска панциря, внушительная масса тела в сравнении с его длиной, поведение, пищевой рацион, временная активность, теплорегуляция и тактика размножения средиземноморской черепахи (Банников, 1951; Пианка, 1981) дают возможность предположить, что такой адаптивный комплекс позволяет минимизировать энергетические затраты организма, а значительные ресурсы использовать на процесс репродукции, что возможно только в узкоопределенных и стабильных условиях среды.
Опросные сведения и наши наблюдения позволяют полагать, что, несмотря на сохранение в общих чертах своих прежних границ, общая численность черепах, обитающих на черноморском побережье Кавказа, довольно быстро сокращается. Возрастной и размерный ее состав, приведенный выше, также свидетельствует об этом. Если даже предположить, что особи младших возрастных групп ведут скрытный образ жизни, что мало вероятно, а потому не заметны, и что естественная смертность по различным причинам для этих возрастов довольно высока, то и в этом случае остается необъяснимым факт полного отсутствия в нашей выборке возрастных групп с длиной карапакса от 120 до 149 мм и то, что следующие две возрастные группы (от 150 до 169мм) представлены только тремя особями (табл. 2). Нам представляется, что это обусловлено комплексной причиной — антропогенным воздействием. Антропогенные факторы, по-видимому, в кратчайший срок, порядка 10—15-ти лет, сведут здесь эту форму черепах на нет. Без сомнения, антропогенные факторы действуют во взаимосвязи, рассмотрим их по степени кажущейся нам значимости.
1. Химическое воздействие различного рода инсектицидов и других препаратов, используемых сейчас и в прошлом, накопление которых в ранениях и в почве перешло через какую-то критическую для черепах фазу. Кроме прямого летального исхода, они могут различными путями негативно влиять на репродуктивные органы взрослой особи, обусловливая изменение частоты мутаций, толщину скорлупы яиц и т. п. (напомним, что из 10 полученных в зоопарке яиц, сформировавшихся еще в природе, 6 оказались неоплодотворенными).
2. Многократное механическое воздействие на почвы в течение вегетационного периода в виноградниках и в садах, вероятно, приводит к гибели попадающих сюда взрослых особей и полностью уничтожает кладки, которые до применения техники вполне успешно здесь завершались выведением потомства. Специальные поиски черепах на промышленных виноградниках показали полное их здесь отсутствие, хотя многие авторы, писавшие о средиземноморской черепахе еще лет пятнадцать тому назад, как правило, указывают среди мест обитания сады и виноградники.
3. Значительные площади, на которых еще обитают черепахи, находятся в зоне интенсивного рекреационного использования. При этом строительство здесь ведется такими методами и в таких масштабах, что ничего не остается от прошлой естественной обстановки. Захламление соседних угодий, частая сеть дорог и тропинок, оставленная строительная техника, увеличение в летний период временного населения в десятки и сотни раз против обычного без сомнения являются мощными факторами, влияющими на тех черепах, которые еще остаются в живых на соседних территориях. Животные малоподвижны, неспособны к дальним перемещениям, и, вероятно, поэтому не могут давать потомство. Известно, что Искусственно создавая черепахам неблагоприятные условия, можно добиться резорбции фолликулов (Банников, 1951).
4. Браконьерский сбор черепах на продажу (даже у московских ребятишек встречаются «купленные на рынке» маленькие средиземноморские черепахи) и на живые и неживые «сувениры», причем как раз тех размерных групп, которых меньше всего оказалось в нашей выборке, также сказывается на численности животных самым непосредственным образом. Несомненно, существенное давление на младшие возрастные группы (с длиной карапакса до 80 мм) оказывают поедающие черепашек с еще не окрепшим панцирем животные (от енотовидной собаки до врановых птиц). На Каждую найденную живую черепашку упомянутой размерной группы попадалось по 2 выеденных хищником панцыря! Взрослые черепахи, очевидно, не имеют серьезных врагов: прямо уничтожают их разве что люди. Из 74 внимательно осмотренных нами особей 7 имели ясные следы очень сильных повреждений панциря в прошлом (в 4 случаях легко идентифицируемые как «повреждения, нанесенные режущим орудием»). Напротив, эктопаразиты (иксодовые клещи Нуаloma plumbeum), видимо, не имеют существенного значения — обычно они были далеко не на всех черепахах и чаще в количестве 2—7 штук на особь (локализовавшихся в подмышечных и паховых впадинах, редко — у основания шеи).
5. Все вышеперечисленные факторы, по-видимому, уже привели к такому положению, что обитающие на черноморском побережье Кавказа черепахи представляют собой не биологическую интеграцию, а ряд генетически обособленных, возможно, давно уже не связанных и количественно неравноценных группировок, в которых происходит инбридинг без каких-либо перспектив на обновление генофонда. К каким непредвиденным последствиям это может привести, сказать трудно. К этому можно добавить, что разрежение популяции ведет к тому, что отдельные взрослые самки, способные давать потомство, остаются неоплодотворенными ввиду отсутствия партнера.
Складывающаяся ситуация с черноморской формой средиземноморской черепахи заставляет нас настоятельно рекомендовать ряд неотложных мер, которые, по нашему мнению, могут остановить развитие событий в неблагоприятном направлении:
1) срочная организация на большей части Анапского, Новороссийского и Геленджикского мехлесхозов заказника с заповедным режимом в определенных местах для сохранения уникальной флоры и фауны, которая больше уже нигде в пределах СССР практически не занимает столь обширных территорий (тем самым под надежную охрану попадает и большая часть популяции средиземноморской черепахи);
2) организация питомника с целью разведения черепах в контролируемых условиях для увеличения плотности популяции на территории заказника.
Алекперов А. М. Земноводные и пресмыкающиеся Азербайджана. Баку, 1978.
Банников А. Г. Материалы к познанию биологии кавказских черепах. — Уч. зап./МГПИ им. Потемкина, 1951, т. 18.
Банников А. Г., Даревский И. С., Рустамов А. К. Земноводные и пресмыкающиеся СССР. М., 1971.
Банников А. Г. Даревский И. С. и др. Определитель земноводных и пресмыкающихся фауны СССР. М., 1977.
Богданов О. П., Синдюков А. П., Шарифов Ф. К. Изменчивость экстерьерных признаков четырех видов черепах СССР. — В кн.: Тез. III Всесоюзн. герпетологической конфер. Краснодар, 1973.
Верещагин Н. К. -Пресмыкающиеся — Reptilia. Животный мир СССР. М.; Л.; 1958, т. 5.
Герасимов И. П. Западный и Центральный Кавказ. Геологическое строение и рельеф. — В кн.: Альпы—Кавказ: Современные проблемы конструктивной географии горных стран. М., 1980.
Даль С. К. Животный мир Армянской ССР. Ереван, 1954, т. 1.
Кесслер К. Ф. Путешествие по Закавказскому краю в 1875 году с зоологической целью. Приложение к трудам СПб. об-ва естествоиспыт. СПб., 1878, т. 8.
Ковалевский С. А. Происхождение Крыма и Черного моря. — Природа, 1966, № 3.
Красная книга СССР. М., 1978.
Малеев В. П. Растительность Причерноморских стран (Эвксинской провинции Средиземноморья), ее происхождение и связи. — Тр./Ботани- чес. ин-т АН СССР, М.; Л., 1940, сер. III, вып. 4.
Мусхелиигвили Т. А. Пресмыкающиеся Восточной Грузии. Тбилиси, 1970.
Никольский А. М. Пресмыкающиеся и земноводные Кавказа. Тифлис, 1913.
Пианка Э. Эволюционная экология. М., 1981.
Плохинский Н. А. Биометрия. Новосибирск, 1961.
Пузанов И. И. Материалы к познанию наземных моллюсков Крыма. — Бюлл. МОИП. Отд. биол., 1927а, т. XXXV, вып. 5.
Пузанов И. И. Поездка на Таманский полуостров и в Предкавказье летом 1926 г. — В кн.: Сб. трудов Центр, муз. Тавриды. Симферополь, 19276, вып.1.
Пузанов И. И. Материалы к познанию наземных моллюсков Кры-Taman und Cis Kaukasien. — В кн.: Ежегодник зоология, музея АН СССР, Л.г 1929.
Пузанов И. И. Своеобразие фауны Крыма и ее происхождение. -— Уч. зап./Горьковск. гос. ун-т, 1949.
Рубцов Н. И. Географические связи флоры Крыма и гипотеза Понтиды — Природа, 1980, № 1.
Соболевский Н. И. Герпетофауна Талыша и Ленкоранской низменности: Опыт зоогеографической монографии. — В кн.: Мемуары зоол. отд.
Об-ва любит, естествозн., антропол. и этногр. М.; Л., 1929, вып. 5.
Терентьев П. В. Герпетология. М., 1961.
Терентьев П. В., Чернов С. А. Определитель пресмыкающихся й земноводных. М., 1949.
Хозацкий Л. И. О нахождении в Европейской части СССР сухопутных черепах. — Природа, 3948, № 4.
Хозацкий Л. И. Наземная черепаха из меотических отложений Крыма. — ДАН СССР. М„ 1947, БУШ, № 9.
Хозацкий Л. И. Современное и прошлое распространение черепах в СССР. — В кн.: Проблемы зоогеографии суши: Мат-лы совещ. во Львове, 1957. Львов, 1958.
Щербак И. Н. Земноводные и пресмыкающиеся Крыма. Киев, 1966.
Funh Е., Vancea S. Fauna Republicii Populare Romine. Reptilia. Bucurest, 1961, vol. XIV, fasc 2.
Jackson O. F. Weight and measurement data on Tortoises (Tesfudo graeca and Testudo hermanni) and their relationship to health —. Jorn. Small Anim. Pract., 1980. № 21.
Honegger R. E. Thereatened amphibians and reptilis in Europe. Council of Europe, 1978.
Obst F., Meusel W. Die Landschildkroten Europas. Leipzig, 1972.
Pritchard P. Encyclopedia of Turtles. T. F. H. Publications. New-Jork., 1979.
Wermuth H., Mertens R. Schildkroten — Krokodile — Briickenchsen. Jena, 1961.