Перейти к содержимому

Итоги изучения питания среднеазиатской черепахи

Обобщены сведения по питанию Agrionemys horsfieldii в природе за все время изучения биологии этого вида. Рассмотрены особенности питания черепахи в различных ландшафтах Центральной Азии. Дана характеристика потребления черепахой растительности, животных и минеральных объектов. На территории ареала черепаха употребляет в пищу 167 видов растений, относящихся к 42 семействам. Основную долю в питании составляют эфемеры из семейств Asteraceae, Poaceae, Brassicaceae, Papaveraceae, Fabaceae, Boraginaceae. По типу пищевой специализации Agrionemys horsfieldii относится ближе к специализированным потребителям, так как проявляет выраженную избирательность в выборе кормовых растений. Предпочитаемые и одновременно обильные виды растений составля¬ют базовые (основные) объекты питания, обеспечивающие стабильное существование популяции. Обсуждается потребление животными токсичных растений. Конкуренция за пищу с домашним скотом происходит только весной в местах с высокой плотностью населения черепахи. Вред, нано¬симый Agrionemys horsfieldii растениеводству, в настоящее время значительно уменьшился из-за вытеснения черепахи с поливных земель и снижения ее численности в районах богарного земледелия.

Среднеазиатская черепаха (A. horsfieldii) широко распространена в пустынных ландшафтах Средней Азии. На подгорных равнинах и лессовых предгорьях она нередко доминирует по чис-ленности над другими видами позвоночных животных и здесь ее по праву можно считать ландшафтным видом. Распространение и численность A. horsfieldii тесно связаны с сезонной вегетацией эфемеров и эфемероидов, которая приходится на весенний период. За короткий период активности, продолжающейся в среднем 2.5 месяца в году, черепахе необходимо дать потомство и накопить запасы для последующего ухода в длительную гибернацию. При таком ритме жизни кормовая база оказывает сильное влияние не только на продолжительность сезонной активности, но и на устойчивое существование популяции. Обеспеченность кормом, наряду с другими факторами среды, определяет степень пригодности территории обитания черепахи и уровень обилия популяции. В связи с этим изучение особенностей питания черепахи в естественных условиях представляет значительный интерес, так как позволяет выяснить такой важный вопрос, как стратегия выживания вида в условиях аридного климата.

К настоящему времени усилиями исследователей накоплены сведения по питанию A horsfieldii в различных районах ее обитания: Казахстане (Параскив, 1956), Туркменистане (Рустамов, 1956; Богданов, 1962; Шаммаков, 1981; Атаев 1985), Узбекистане (Захидов, 1938,1971; Поляков, 1946; Мекленбурцев, 1958; Богданов, 1960; Мам бетжумаев, 1972; Lagarde et al., 2003; Бондаренко и др., 2010), Таджикистане (Чернов, 1959; Саид- Алиев, 1979), Киргизии (Яковлева; 1964), Иране (Kami, 1999; Bondarenko, Peregontsev, 2009), Китае (Shi, 1998). Большинство этих сведений носят фрагментарный характер и не дают целостного представления о питании среднеазиатской черепахи в природных условиях. Помимо известных литературных сведений мы также располагали собственными неопубликованными данными по результатам наблюдений по питанию A. horsfieldii в Узбекистане (апрель 2000—2005 г.г., май 2007 г., апрель—май 2008 г.) и Казахстане (апрель 2003 г., май 2005 г., май 2011 г.). В связи с этим назрела необходимость обобщить имеющиеся материалы для подведения итога изучения этого важного аспекта биологии вида, а также выявить упущения в его изучении.

Особенности питания в различных ландшафтах.
По литературным сведениям (Параскив, 1956; Рустамов, 1956; Мамбетжумаев, 1972; Саид-Алиев, 1979; Шаммаков, 1981; Бондаренко и др., 2010; Shi, 1998; Kami, 1999; Bondarenko, Peregontsev, 2009) и нашим неопубликованным данным, A. horsfieldii потребляет на территории своего ареала 167 видов растений, относящихся к 42 семействам (табл.1). В действительности этот список мог быть значительно шире, так как некоторые упоминаемые в литературе растения не определены до вида. В список кормов старались не включать те растения, которые были определены только до рода и семейства, так как при этом нельзя установить, одинаковые или разные виды отмечались разными авторами. Из растений, представленных только родом или семейством, в список внесены лишь те, которое упоминались единственный раз в одном из источников. В таком случае повторное упоминание их в сводном списке исключалось. Анализ показал, что 60% всех поедаемых видов пришлось на 6 семейств: Asteraceаe, Brassicaceae, Chenopodiaceae, Fahaceae, Liliaceae, Poaceae. Во всех географических регионах, включающих разнообразные ландшафты, питание черепахи характеризуется большим таксономическим разнообразием. В Каракалпакетане (Узбекистан) в низовьях р. Амударьи и прилегающих к ним Кызылкумах черепаха использовала в пищу 84 вида растений, относящихся к 27 семействам (Мамбетжумаев, 1972). В центральном и южном Узбекистане на лессовых предгорьях, субглинистой равнине и песчано-щебнистой равнине, в рационе было 43 кормовых вида из 17 семейств (Bondarenko et al., 2011), а в западном Китае (Синьцзян) — 47 видов, составивших 80% от произрастающих в национальном заповеднике Хучэн (Shi, 1998).

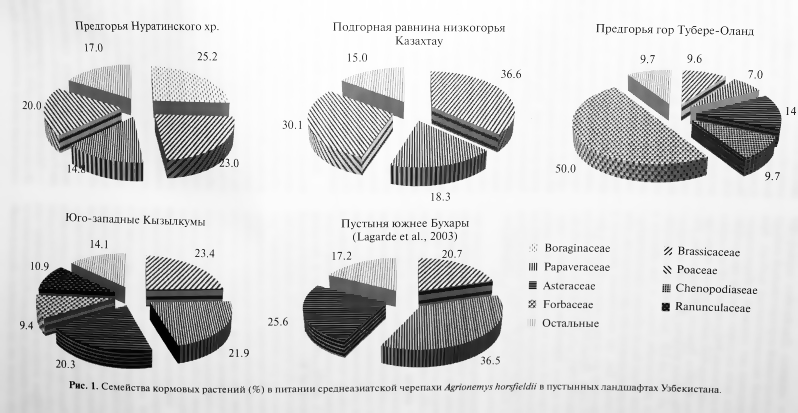
Количество видов и семейств растений, потребляемых A. horsfieldii в различных ландшафтах, сильно варьирует. Высокое разнообразие кормов отмечалось в тугаях р. Амударьи, а наименьшее — на пустынных равнинах Турана. Анализ потребления растений в 14 районах Узбекистана, Казахстана, Таджикистана и Туркменистана показал, что в большинстве ландшафтов (>87%), черепаха использовала в пищу 10 и более видов растений. В ландшафтах южного Узбекистана наибольшее предпочтение черепахи отдавали видам семейств Brassicaceae, Papaveraceae, Fabaceae, Poaceae (рис. 1). В значительно меньшей степени предпочитались растения семейств Chenopodiaceae, Ranun- culaceae, Asteraceae, Boraginaceae. На перечисленные 8 семейств приходилось 83—90% поедаемых черепахой растений. В однотипных ландшафтах спектр потребляемых объектов, был сходным. На песчано-щебнистой равнине в юго-западных Кызылкумах (севернее г. Газли) и южнее — под г. Бухарой на долю семейств Brassicaceae, Papaveraceae Asteraceae пришлось 66 и 83%, соответственно.

Зависимость питания черепахи от ландшафтных условий наиболее подробно изучено в Узбекистане (Мамбетжумаев, 1972, Lagarde ct al., 2003; Bondarenko et al., 2011). На лессовых предгорьях хребта Нуратау и на подгорной равнине гор Казахтау (пустыня Кызылкум), имевших сходную эфемерово-полынную растительность, в питании доминировали пять видов растений, из которых три были общими (Bondarenko et al., 2011). Из злаков (Роасеа) чаще других поедались Amsantha tectorum и Роа bulbosa. Из Papaveracea - Нуресоит narviflorum, из Brassicaceae - Leptaleum filifoleum, из Boraginaceae – Heterocaryum ringidum. На долю пяти эфемерных видов в предгорьях хребта Нуратау пришлось 73.3%, а на суглинистой равнине Ктзахтау - 80.6%. На три общих в диете вида растений - Amsantha tectorum, Нуресоит paniflorum и Leptaleum filifoleum - пришлось 49.2 и 71.4% соответственно.

На лессовых предгорьях Тубере-Оланд (Кашкадарьинская обл.) с преобладанием эфемеров в питании доминировали Fabaceae {Astragalus filicaulis, Trigonella grandiflora), доля которых составила 50.0%. На растения семейства Chenopodiaceae (Spinacia turcestanica), Papaveracea (Papaver pavonium) и Asteraceae (Koelpinia linearis) пришлось в общей сложности 25.4%.

Избирательность питания. Значительная доля видов растений, в том числе доминирующих в пустынных сообществах, не имеют большого значения в питании A. horsfieldii или вовсе не поедаются. Другим, менее многочисленным, а также редко встречающимся видам, напротив, отдается предпочтение. На равнинах Турана основу пустынных травянистых сообществ составляют эфемероидные злаки Poaceae и осочки Саrех, но при этом С.pachystylis и С.physodes редко встречались в пище черепахи (Lagarde et al., 2003; Bondarenko et al., 2011). Потребление этих видов имело вынужденный или случайный характер. Что касается злаков, то их содержание в пище зависит от сезона и года. При наличии более предпочитаемых кормов они потребляются реже. В разных ландшафтах Узбекистана для обобщенной оценки соответствия обилия видов в фитоценозах и частоты их предпочтения рассчитывались коэффициенты ранговой корреляция Спирмена, которые везде оказались близки к “0”, что говорит о полном отсутствии индифферентного отношения к растительности (Bondarenko et al., 2011).

Степень пищевой специализации характеризует индекс пропорционального сходства (ИПС), обобщающий отклонение относительного обилия объектов питания в диете от относительного обилия его в выборках в сообществе (Feinsiger et al., 1981). Индекс пропорционального сходства рас¬полагается в пределах от 1, когда животные потребляют любую пищу, до минимального значения, когда они узко избирательны и ее выборе. Оказалось, что A. horsfieldii располагается ближе к специализированным потребителям (Bondarenko et al., 201 1). Среднее значение индекса пропорционального сходства для четырех местообитаний Узбекистана составило 0.22 (0.16-0.36). По другим данным (Lagarde et.al.. 2003). A. horsfieldii заняла промежуточное положение между специализированными и универсальными видами. Возможно, различие значений индекса вызваны методическим подходом исследований: в одном случае подсчитывалось количество поедаемых черепахой объектов, а в другом случае оценива¬лась их масса. Наблюдения Д.А. Бондаренко и Т.Н. Дуйсебаевой в песках Таукум (Казахстан. Южное Прибалхашье) в мае 2011 г. подтвердили очевидную кормовую избирательность A. horsfiel¬dii: при разнообразии растений из семейств Poaceae (Anisantha spp., Poa spp.), Cyperaceae, Brassicaceae черепаха предпочитала несколько видов: Scorzonera sericeolanta, Papaver pavonium, Eremurus anisopterus, Ceratocephalus falcatus. Имеются сведения о том, что другие Testudinidae также в большей степени избирательные потребители, чем универсалы. Так, Testudo graeca по характеру питания расположилась ближе к специализированным потребителям (ИПС < 0.25), чем к “генералистам" или универсалам (Mouden et al., 2006). Выраженную избирательность в питании выявили у гоферовой черепахи (Gopherus agassizii) в Северной Америке (Jennings, 1993, 1997).

Предпочтение черепахой отдельных видов растений оценивалось индексами Хантера (Hunter, 1962) и Джейкобса (Jacobs, 1974). Индекс Хантера оценивает процентное отношение кормовых видов в нише к их обилию в выборках из сообщества. Значения индекса Джейкобса варьируют между -1 (максимальный отрицательный выбор) и 1 (максимальный положительный выбор), при “0” значении индекса нет никакой избирательности. Оба индекса дали сходную оценку предпочтения растений в пустынях Узбекистана (Bondarenko et al., 2011). Наиболее предпочитаемые виды относились к семействам Poaceae, Brassicaceae, Ра- paveraceae, Fabaceae, а индекс Джейкобса варьировал для них от 0.6 до 1.0. Значения индекса зависели от доли растения в пищи, и его обилия в сообществе. Чем ниже было обилие предпочитаемого вида и соответственно его доступность, тем выше был индекс. Так, на подгорной равнине у низкогорья Казахтау из-за высокого обилия в фитоценозе Leptaleum filifolium, самого поедаемого вида (доля в диете 37%), индекс Джейкобса составил 0.6. В то же время Нуресоит parviflorum — другой предпочитаемый вид с меньшей долей в диете (18%) из-за более низкого обилия имел индекс 1.0. Liliaceae из-за низкого обилия в сообществах имели в диете низкую долю (2—3%). Однако индекс их избирательности превышал 0.9.

Таблица 1. Список кормовых растений Agrionemys horsfieldii

Семейство

Вид

Источник

Семейство

Вид

Источник

Alliaceae

Allium sabulosum

5


Spirorhynchus sabiulobus
Steptoloma desertorum Strigosella turkestanica
Strigosella africana
Strigosella scorpioides
Strigosella trichocarpa
Strigosella sp.
Tetracme quadricornis
Tetracme recurvata

11
1,2
2
11
11
11
2
2
5

Amaryllidaceae


Ixiolirion tataricum

10, 11

Apiaceae

Aphanopleura capillifolia
Ferula foetida

11
1

Apocynaceae

Аросуnum scabrum

3

Araсеае

Eminium albertii
Torilis leptophylla

4
4

Asclepiadaceae

Cynanchum sibiricum

3

Capparidaceae

Capparis spinosa

3

Asphodelaceae


Eremurus anisopterus
Eremurus inderiensis
Eremurus suworovii

12
3
4

Caryophyllaceae

Holosteum umbellatum

8,11, 12

Asteraceae

Acroptilon repens
Amberboa sp.
Artemisia diffusa
Artemisia herba albae
Artemisia vulgaris
Centaurea solstitialis ?
Centaurea pulchella
Cirsium ochrolepideum
Cousinia minuta
Crepis sibirica
Cousinia policephala
Epilasia mirabilis
Erigeron canadensis
Handelia trichophylla
Heteracia szovitsii
Heteroderis pusilla
Koelpinia linearis
Lactuca tatarica
Matricaria sp.
Oligochaeta vvedenskyi Rhabdotheca korovinii Schischkinia albispina Scorzonera circumflexa Scorzonera pusilla
Scorzonera sericeolanta
Pterotheca aralensis
Taraxacum bicorne
Taraxacum comitans Taraxacum monochlomydeum

1
8
11
10
3
8
1
1
3
4
4
8
3
11, 12
3
3
1,2,9, 10
3, 11
8
3
3
3
10, 11
5
12
3
3
3
4

Chenopodiaceae

Agriophyllum sp.
Anabasis sp.
Atriplex топеta
Ceratocarpus arenarius
Ceratocarpus utricufosus
Chenopodium sp.
Halimocnemis sclerosperma
Halimocnemis villosa
Halocharis hispid
Haloxylon persicum
Hypocylix kerneri
Kochia scoparia
Salsola sogdiana
Salsola subaphylla
Spinacia turcestanica

1
3
3
3
3
3
3
3
3
3
3
7
3
3
1
11

Convolvulaceae

Convolvulus arvensis
Convolvulus divaricatus

3,5
3

Cuscutaceae

Cuscuta sp.

3, 9

Cyperacea

Carex pachystylis
Carex physodes

11
1, 3

Dipsacaceae

Scabriosa sp.

8

Elaeagnaceae

Elaeagnus turkomanica

3

Ephedraceae

Ephedra procera

7

Equistaceae

Equisetum ramosissimum 3

Berberidaceae


Leontice everstnanni

5


Euphorbiaceae

Chrozophora sabulosa
Euphorbia cheirolepis
Tithymalus turczaninowi

11
1
3

 Boraginaceae


Arnebia (decumbens?) Heliotropium dasycarpum
Lappula sp.
Nonea caspica
Heterocaryum rigidum
Rochelia bungei
Rochelia leiocarpa

8
1,3
2
2, 3, 12
11  
3
3

Fabaceae


Alhagi camelorum
Alhagi persarum
Alhagi pseudalhagi
Ammodendron conollyi
Astragalus campylorrhynchus
Astragalus contortuplicatus
Astragalus filicaulis
Astragalus lasiophyllus
Astragalus lehmannianus
Astragalus ophiocarpus
Astragalus orbiculatus
Astragalus paucijugos Astragalus subbijugus Eversmannia subspinosa

1
3
3
1, 3
4,11
3
11
3
3
3
3
5
3
3

Brassicaceae

Alyssum desertorum
Lepidium draba
Leptaleum filifolium
Matthiola chenopodiifolia

1, 8, 11
11
10,11
3, 11

Семейство

Вид

Источник

Семейство Вид Источник
 

Glycyrrhiza glabra
Halimodendron halodendron
Medicago lupulina
Medicago saliva
Sophora alapecoroides
Trigonella arcuata
Trigonella grandiflora
Trigonella noeana 

3
3
3
5
5           
1, 11
2
2


Eremopyrum orientale
Eremopyum distans
Lolium perrene (Paspalum  digitaria)
Phragmites communis
Poa bulbosa
Stipa szovitsiana
Vulpia myuros

1,2,3,10,11
11
4
3
1,2,8,11
3
11

Fumariaceae Fumaria vaillantii 3  Polygonaceae  Atraphaxis spinosa
Calligonum caput-medusae
Polygonum aviculare
Polygonum oxanum

3
3
6
1, 3

 
Iridaccae Iris kopeldaghensis 5 
Lamiaccae Eremostachys baburii 11  Ranunculaceae

Ceratocephalus faleatus 
Nigella intergrifolia (bucharica)
Ranunculus severtzovii
Сlematis orientalis
Delphinium songoricum

8, 10,11, 12
11
11
3
3

Liliaccae

Asparagus persicus
Asparagus sp.
Rhinopetaleum karelinii
Tulipa alberti
Tulipa lehmanniana 

3
3
12
12
11
 Rosaceae

Hulthemia persica
Potentilla soongarica
Potentilla supina

1
12
3 
Melanthiaccae Merendera robusta 5, 8, 11 Rubiaceae Asperulla (odorata?)
Galium (uliginosum?)

1
1

Orobanchaceae Orobanche cumana 3 Salicaceae Populus pruinosa 3
Papaveraccae

Hypecoum paniflorum
Papaver pavoninum
Roemeria hyhrida

8, 11
1,5,8,9,10,11,12
8, 11, 12

Scropluilariaceae Dodartia orientalis

1, 3, 5

Planlaginaccae

Plantago sp.
Veronica sp.

1
1, 8

Solanaceae Lycium ruthenicum 
Tamarix hispida
Tamarix  laxa
Tamarix sp.
3
3
3
3
Poaccae

Aeluropus litoralis
Anisantha danlhoniae
Anisantha tectorum
Avena fatua
Colpodium humile
Crypsis aculeata
Crypsis sp.
Echinochha cruss-galli
Eremoруrum bonaepartis

3
11
1,2, 5,11
6
3
1
1
3
2,11

Thymelaeaceae  Diarthron vesiculosum  1
Typhaceae Typha sp. 3
Zygophyllaceae Peganum harmala
Zigophyllum lehmannianum
Eremoруrum orientale
Eremopyum distans
3, 11
11
1, 2, 3, 10, 11
11

Источники: 1 - Параскив, 1956; 2 - Рустамов, 1956; 3 - Мамбетжумаев, 1972; 4 - Саид-Алиев, 1979; 5 - Шаммаков, 1981; 6 - Shi, 1998; 7 = Kami, 1999; 8 - Lagarde et al., 2003; 9 - Bondarenko, Peregontsev, 2009; 10 - Бондаренко и др., 2010; 11 - Bondarenko, Peregontsev, 2011; 12 - Бондаренко Д.А., Дуйсебаева Т.Н., неопубл. данные (Казахстан, Южное Прибалхашье, 2011).

Рис. 1. Семейства кормовых растений (%) в питании среднеазиатской черепахи Agrionemys horsfieldii в пустынных ландшафтах Узбекистана.

Использование кормовых ресурсов. Ресурсы черепахи по степени привлекательности объектов можно разделить на: а) предпочитаемые корма, которые становятся основными кормовыми объектами при высоком обилии и доступности, б) дополнительные корма — менее привлекательные растения, а также объекты животного происхождения и минеральные добавки, в) вынужденные корма — редко потребляемые объекты, доля которых в питании увеличивается незначительно даже при недостаточном количестве предпочитаемых объектов. Однако предпочитаемые корма с низким обилием в сообществе занимают в питании черепахи небольшое место и с функциональной точки зрения не могут считаться основными. Поэтому также важно рассматривать кормовые ресурсы с позиции обеспечения ими жизнедеятельности вида и оценивать как по привлекательности, так и по их доле в пищевом спектре. Наблюдения показали, что в оптимальных местообитаниях с высокой плотностью A. horsfieldii всегда вегетирует несколько видов растений с высоким индексом избирательности и одновременно высоким уровнем обилия в сообществе (Bondarenko et al., 2011). Эти виды составляют стратегическую часть диеты и обеспечивают устойчивое существование популяции. Чтобы ясно представить стратегию питания A. horsfieldii кормовые ресурсы предлагалось разделить на три группы: а) базовые (основные) объекты, б) дополнительные объекты, в) случайно поедаемые и не поедаемые объекты.

Базовые объекты составляют основу питания и имеют высокую долю (обычно свыше 10%) в диете черепахи. При этом в одном ландшафте вид растения может входить в число базовых объектов, а в другом — нет из-за низкого обилия сообществе и соответственно низкой доли в диете. Таким образом, виды растений, входящие в группу базовых объектов, имеют не только пищевое предпочтение, но и высокое обилие в сообществе Индекс Джейкобса каждого из них превышает 0.6. Например, на подгорной равнине гор Казахтау из 21 вида растений, выявленных в сообществе, 10 (47.6%) вошло в питание черепахи, но только 4 вида составили основную часть питания На их долю в диете пришлось 82% (Bondarenko etal., 2011). В других местообитаниях число видов, формирующих базу питания, также ограничивалось несколькими видами. По данным маршрутных наблюдений в Каршинской степи (Узбекистан, урочище Дульталитау, 04.2005г.), на долю двух видов Astragalusfilicaulis и Taraxacum sp. пришлось соответственно 61 и 30%. В предгорьях хребта Актау севернее г. Навои (Узбекистан, 04.2005 г.) Astragalus filicaulis составил 88% поедаемых растений. На Арысьском массиве (Южный Казахстан, 05.2005) активно поедались Papaver pavoninum (52%) и Astragalus filicaulis (24%). Растения, вошедшие в группу базовых объектов, представлены семействами Poaceae, Brassicaceae, Fabaceae, Papaveraceae. По питательной ценности, связанной с биохимическим составом, наиболее питательными считаются растения семейств Brassicaceae, Fabaceae, Cyperaceae, Apiaceae, Asteraceae, Poaceae (Ларин, Ларина, 1956). Формирование базовой части диеты A. horsfieldii высоко питательными видами вполне оправдано. Базовые объекты можно выделить в питании и других растительноядных черепах. Так, в питании Gopherus agassizii в пустыне Мохаве высокая доля (44%) пришлась на виды Fabaceae (Jennings, 1997).

Дополнительные объекты представлены растениями, которые в конкретном местообитании за-нимают менее 10% в пищевом спектре. К этим объектам относятся виды с высокой избиратель-ностью, но низким обилием в растительных сообществах, из-за которого их доля в пище ограничена, а также малопривлекательные виды растений с низким индексом Джейкобса. При высоком обилии виды с высокой избирательностью становятся базовыми, так как преобладают в диете. К этой группе относятся животные корма и минеральные добавки (фекалии, костные останки, погадки хищных птиц, минералы), составляющие немногочисленную, но важную пищевую группу.

Случайно поедаемые и не поедаемые объекты. Даже при высоком обилии эти объекты мало привлекают черепаху. Их употребление носит случайный характер. К этим видам относятся, прежде всего, растения, содержащие алкалоиды и эфирные масла, а также сухолистные осоки: Саrех pachystylis, С. physodes.

Многолетние и сезонные особенности питания.
Пищевой спектр A. horsfieldii может сильно изменяться по годам и сезонам. На многолетнюю динамику питания черепахи влияет весенняя вегетация растительности. Трехлетнее наблюдение на участке предгорий хребта Нуратау (Узбекистан) показало, что динамика потребления черепахой пяти наиболее предпочитаемых видов растений имела значительные различия (рис. 2). В течение сезона (с марта по май) изменение процентного соотношения в питании A. horsfieldii связано со сроками начала и окончания вегетации различных видов растений (Lagarde et al., 2003; Bondarenko et al., 2011). Мелкие растения с нежной корневой системой, такие как Holosteum umbellatum, Alyssum desertorum, Ceratocephalus falcatus, рано начинают рост, быстро созревают и к концу апреля элиминируют в фитоценозе. Их место в питании занимают устойчивые к засухе виды с более про-должительной вегетацией, например: Heterocaryum rigidum, H. suhsessile, Koelpinia linearis, Trigonella sp., Ixiolirion tataricum. По мере выгорания растительности в апреле-начале мая черепахи перемешаются в поисках участков, на которых эфемеры сохранились. В условиях равнин и пред-горий эфемеровая растительность дольше сохраняется в лощинах, долинах саев, на склонах се-верной экспозиции. Так как черепахи ведут преимущественно оседлый образ жизни (Панов, Галиченко, 1980; Брушко, Кубыкин, 1982), эти перемещения обычно ограничиваются несколькими сотнями метров. Перегруппировки в поисках корма характерны для засушливого сезона и обычно происходят в южной част и ареала A. horsfieldii. На юге Узбекистана в Кашкадарьинскои обл. перемещение черепах по предгорьям на зеленые пятна эфемеров наблюдались нами уже 11 апреля 2001 г. В Таджикистане смену кормовых угодий отмечал Чернов (1959).

Потребление воды. Среднеазиатская черепаха охотно потребляет воду в природе, если предоставляется возможность (Поляков, 1946; Карташев, 1955; Костин, 1956; Параскив, 1956; Богданов, 1960; Захидов; 1971). По нашим наблюдениям в различных районах Узбекистана (Центральные Кызылкумы, предгорья хребта Нуратау и хребта Мальгузар) черепахи пили дождевую воду и из луж, образовавшихся на глинистой почве, и у колодцев в местах водопоя скота. Чаще это наблюдалось в жаркие дневные часы. На хорошо дренированных песчаных почвах, быстро впитывающих дождевую воду, необходимую влагу черепахи обычно получают в связанном состоянии с пищей. Возможно, поэтому некоторые исследователи не наблюдали потребление воды в природе и даже отрицали его (Богданов, 1882; Никольский, 1915; Кашкаров, 1932).
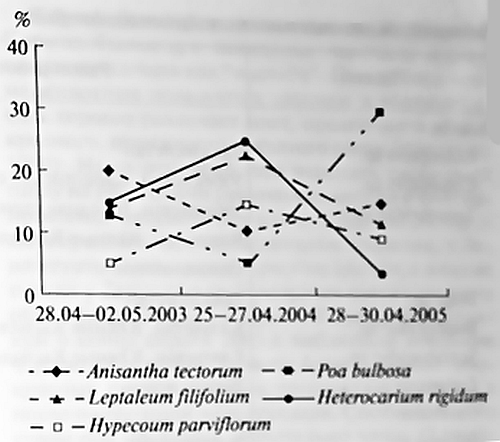
Рис. 2. Потребление среднеазиатской черепахой предпочитаемых видов растения в предгорьях хребта Нуратау (Узбекистан) весной 2003-2005 гг.

Потребление животных кормов и минералов. Среди поедаемых черепахой животных преобладают беспозвоночные - различные виды насекомых, и паукообразных (табл. 2). Мелкие позвоночные (пресмыкающиеся, птицы, грызуны) занимают незначительную долю в питании черепахи. По нашим данным потребление животных и продуктов их жизнедеятельности в различных ландшафтах Узбекистана в апреле 2003-2005г.г. не превышало 2% от общего числа потребляемых объектов. В южном Туркменистане доля желудков с членистоногими (Teniobridae, Solifugae) также была небольшой и составила менее 4% (Шаммаков, 1981). Однако при изобилии членистоногих их доля в питании может увеличиваться в засушливый сезон в связи с недостатком растительной пищи (Дубинин, I954). Так, в Южных Кызылкумах Параскив (1956) обнаружил жуков (Scarabaeidae, Tenebrionidae, Buprestidae) в 7 (58%) из 12 вскрытых желудков.

Очевидно, доля животного корма в питании зависит от его доступности. Добычей A.horsfieldii обычно становятся малоподвижные или погибшие животные. В Туркменистане черепаха поеда-ла погибших в результате градобоя каменку и афганских полевок (Атаев, 1985), а в Узбекистане (Кызылкумы) В.О.Судярев (личное сообщение) наблюдал черепаху, пытавшуюся есть мертвую трясогузку (Motacilla), задушенную восточным удавчиком (Etyx tataricus).

Потребление черепахой минеральных объектов органического и неорганического происхождения в природе отмечалось многими исследователями (Параскив 1956; Чернов, 1959; Мамбетжумаев, 1972; Брушко. 2005; Наши данные). В число этих объектов вошли костные останки, погадки хищных птиц, фекалии различных животных, минералы и их соли. Поедание костных останков, в том| числе фрагментов старых панцирей, отмечалось нами не часто, но по всему ареалу. Брушко (2005) наблюдала в Мойынкумах (Казахстан) продолжительное обгладывание черепахами костей сайгака. Весьма активно поедались погадки хищных птиц (Мамбетжумаев, 1972). В Таджикистане в желудках черепах находили мелкие (до2 см) камешки (Чернов, 1959). В Южном Казахстане (район г.Арысь) мы наблюдали семилетнюю особь, евшую кусочек известняка, а в предгорьях хр. Мальгузар (Узбекистан) взрослого самца, потреблявшего минерализованную глину. Поедание глины в южных Кызылкумах (Казахстан) отмечал также Параскив (1956).

Таким образом, потребление животных и минеральных веществ имеет широкую географию, а список объектов разнообразен. Потребление минеральных солей, содержащихся в костях и почве, необходимо для формирования скелета и панциря, составляющих более 50% массы тела, а также скорлупы яиц. Животные белки занимают в питании черепахи небольшое место, но они востребованы как источник необходимых аминокислот.
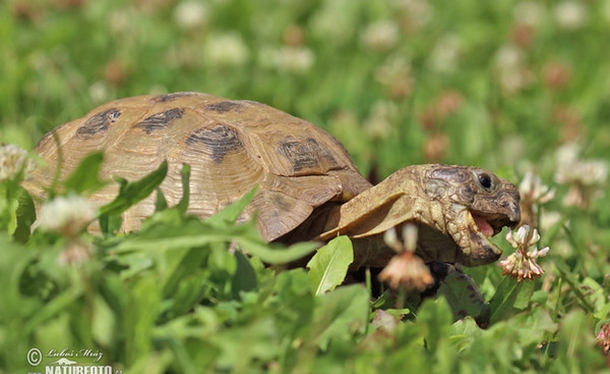
Таблица 2. Животные в питании Agrionemys horsfieldii

Таксон

Район работ

Количество 
особей

Источник

Insecta
    Coleoptera sp.


Таджикистан


—


Чернов, 1959;

    Coleoptera sp.

Узбекистан, Каршинская степь

1

Мекленбурцев, 1958

    Teneobridae sp.

Узбекистан, Голодная степь
Казахстан, Южные Кызылкумы
Туркменистан

—
—
6

Дубинин, 1954;
Параскив, 1956
Шаммаков, 1981

    Blaps sp.

Таджикистан

—

Чернов, 1959

    Buprestidae sp.

Казахстан, Южные Кызылкумы

—

Параскив, 1956

    Scarabaeidae sp.

Казахстан, Южные Кызылкумы

—

Параскив, 1956

    Lethrus sp.

Таджикистан

—

Чернов, 1959

    Carabidae
        Ditomus sp.


Таджикистан


—


Чернов, 1959

    Aristus sp.

Таджикистан

—

Чернов, 1959

    Plalysma sp.

Таджикистан

—

Чернов, 1959

    Cicindella sp.

Таджикистан

—

Чернов, 1959

    Elateridae
        Athous sp.


Таджикистан

—

Чернов, 1959

    Diptera sp.

Таджикистан

—

Чернов, 1959

    Orthoptera sp.

Таджикистан
Узбекистан, Голодная степь

—
—

Чернов, 1959
Дубинин, 1954;

    Acridoidea sp.

Узбекистан, Каршинская степь

1

Мекленбурцев, 1958

Araechnoidea
    Solifugae sp.


Туркменистан
Узбекистан, Голодная степь
Узбекистан, Каршинская степь


2
—
1


Шаммаков, 1981
Дубинин, 1954;
Мекленбурцев, 1958

Mollusca
    Gastropoda sp.

Таджикистан
Казахстан, Арысьский массив

3
1

Чернов, 1959
Бондаренко Д.А, 2003, набл.

Reptilia
    Sauria
    Cyrtopodion russowi


Казахстан, Южное Прибалхашье


1


Параскив, 1954

Aves
    Passe riformes
    Motacilla eitreola


Узбекистан, Южные Кызылкумы


1


Сударев В.О., 2005, набл.

    Oenanthe sp.

Туркменистан, Карабиль

1

Атаев, 1985

Mammalia
    Rodentia
     Microtus afghanus


Туркменистан, Карабиль


2


Атаев, 1985

    Mus musculus

Туркменистан, Копетдаг

1

Шаммаков, 1981

Прочерк — число животных не указано.

Потребление ядовитых растений. На питание Testudinidae ядовитыми для травоядных млекопи-тающих растениями обращали внимание многие исследователи (Параскив, 1956; Meylan, 1988; Longepierre, Grenot, 1999; Lagarde et al., 2003; Bondarenko et al., 2011). По нашим наблюдениям, токсичные растения, хотя и поедаются среднеазиатской черепахой, но не составляют основу питания. Некоторые виды поедались чаще других, например Ceratocephalus falcatus, Ranunculus severtzovii. В предгорьях хребта Нуратау (Узбекистан) наблюдали, как A. horsfieldii активно выгрызала сочную сердцевину побега Peganum harma/a, ядовитого для скота (Гаевская и др., 1958). Другая особь в этом же районе наблюдений охотно поедала листья Merendera robusta, содержащие колцихиновые алкалоиды (Аликулов, 1993). Саид-Алиев (1979) отметил в предгорьях Таджикистана в списке кормов черепахи Eminium albertii (семейство Araceae) содержащий токсин сапонин и алкалоиды.

Причина потребления животными растений, содержащих токсины, определенно не выяснена. Некоторые авторы связывают их потребление с антигельминтной стратегией (Павленко, Зинчен-ко, 1981; Satorhelyi, Sreter, 1993; Longepierre, Grenot, 1999). Известно, что в природе черепахи сильно заражены нематодами (Параскив, Чернов, 1959; Наши наблюдения). Возможно, по-требление ядовитых растений способствует освождению их от паразитов, но убедительных дозательств в пользу этого нет. Несмоненным остается тот факт, что поедаемые токсичные растения содержат много влаги, необходимой животным в условиях ее дефицита в аридном климате. Можно предположить, что их выбор черепахой вызван этим обстоятельством. Весной 2007 г. в Кызылкумах и на Устюрте (Узбекистан) нами наблюдалось очень слабое развитие эфемеровой растительности. Из-за ее недостатка черепаха неоднократно поедала молодые побеги полыни (Artemisia sp.), что не отмечалось в годы с изобилием эфемеров.

Кормодобывающее поведение и активность. Кормодобывающее поведение черепахи можно охарактеризовать как “пастьба”. При выборе корма животные пользуются зрением и обонянием. Она хорошо различает цвет, предпочитая корма красного, оранжевого и желтого цвета (Васильев, 1999). Нами отмечено, что черепаха распознает пищу на расстоянии нескольких метров и целенаправленно направляется к ней. У Poa bulbosa черепаха предпочитает колосовидные соцветия, у Раpaver pavoninum - яркие красные цветки, а желтые цветки у Taraxacum sp. Приоритет цвета влияет на объем потребляемого корма. В пустыне Кызыл-кум в конце апреля 2005 г. наблюдали поедание черепахой ремерии Roemeria hybrida. Фиолетово-красные цветки ремерии распускались утром, а после полуденной жары увядали. Соответственно утром она поедалась значительно чаше. О предпочтении соцветий и плодов упоминали также другие авторы (Параскив, 1956; Чернов, 1959; Богданов, 1960; Lagarde et al., 2003).

Кормодобывающая активность, A.horsfieldii зависит от погодных условий и, главным образом, температуры среды. В предгорьях хребта Нуратау (28.04 - 2.05.2003 г.; 25 - 27.04.2004 г.) пик пишевой активности наблюдался при температуре грунта 31—39°С. Анальная температура тела пи-тавшихся особей (n = 20) составила в среднем 33.3 ± 0.4°С (28-35°С). В ясную погоду наблюдалось два пика активности с перерывом в дневные часы В облачную (пасмурную), но теплую погоду перерыв между утренней и вечерней активностью смазывался, так как многие особи оставались на поверхности.

В литературе нет сведений по таким важным вопросам питания A.horsfieldii, как качество кормовых ресурсов, доступность и скорость потребления пищи, эффективность усвоения (перевариваемость), энергетический баланс питания, которые подробно изучены у растительноядных млекопитающих (Абатуров, 2005). О суточном потреблении пищи A.horsfieldii имеются разрозненные сведения. Захидов (1938) сообщал о том, что за сутки 2 черепахи съели 180 г и 225 г люцерны. Это может составить 10-20% от массы взрослой особи в разных популяциях. По другим данным вес влажного пищевого комка желудка вскрытых черепах варьировался в пределах 5-42 г (Богданов, 1962). По сообщению Параскива (1956), пищевой комок половозрелых особей старше 10 лет весил 40-62 г, а молодых черепах - 20-30 г. Близкие данные получил Поляков (1946), по 10 желудкам: в конце дня (18 ч) средний вес содержимого желудка составлял 53 г. Он же сообщил о скорости переваривания пищи. Через 3 ч после насыщения вес пищи в желудке составлял 38.5 г, а через 10 ч уже 5.6 г. Надо учесть, что черепаха успевает в течение дня переварить часть пищи, и потребляемая за день фитомасса весит больше, чем изъятый из желудка пищевой комок. Результаты хронометрирования питания A. horsfieldii, полученные в западном Китае, показали, что половозрелые особи затрачивали на питание 27.8 ±21.5 мин/день, что в 2.7 раза превышало пищевую активность неполовозрелых особей — (10.3 ± ± 3.4 мин/день, Shi, 1998). Первая группа черепах потребляла задень 9.7 ± 7.3 г фитомассы, а вторая всего 4.1 ± 1.8 г (растительность взвешивали в естественном состоянии — личное сообщение проф. Ши Хаи-тао) В Узбекистане задень черепахи затрачивали еще меньше времени на питание (Lagarde et al., 2003). Самцам в среднем требовалось 7.8 мин, а самкам почти в два раза больше — 14.4 мин. От общей дневной активности самцов это составило всего 7.2%, а самок — 20.5%. Скорость потребления самцами и самками свежего корма составила 0.9 г/мин и 1.9 г/мин. Используя эти данные, легко рассчитать средний вес потребляемой за день свежей пищи: самцы в среднем потребляли 7.0 г, а самки — 27.4 г. Очевидно, что крупные половозрелые особи, особенно самки, которые крупнее самцов, дольше питаются и больше потребляют пищи, чем неполовозрелые особи.

Таким образом, данные о продолжительности питания и массе съедаемой задень пищи у разных авторов сильно варьируют. Во всех упомянутых работах исследователи измеряли массу только естественного (сырого) корма, что позволяет проводить сравнение имевшихся данных. Возможно, это вызвано особенностями условий наблюдений, объемом выборки, погрешностями в определении веса и т.д. По-видимому, в естественных условиях черепаха съедает за день меньше корма (Shi, 1998; Lagarde et al., 2003), чем она могла бы съесть в условиях эксперимента или постановочных наблюдений (Захидов, 1938, 1971), поскольку время ее дневной активности ограничивается из-за повышения температуры среды. Во время вынужденного перерыва активности, продолжающегося несколько часов, черепаха не питается. Кроме того, значительная часть активного времени расходуется на поиск разреженно растущих в пустыне кормовых растений.

Конкуренция за пищу и нагрузка на пастбища.

По нашим наблюдениям, прямых конфликтов между черепахами за пищу не наблюдалось. В литературе высказывались предположения о возможной пищевой конкуренции A. horsfieldii с другими животными, в частности с травоядными копытными (Захидов, 1938; Чернов, 1959; Богданов, 1960; Мамбетжумаев, 1972; Соломатин, 1973; Шаммаков, 1981; Lagarde et al., 2003). Это предположение основано на потреблении копытными черепахой одних и тех же кормовых видов. Однако специальных исследований не проводилось и есть основание полагать, что в действительности такой конкуренции нет. Во-первых, оптимальные биотопы черепахи и многих видов копытных обитающих в горной местности, не совпадают Копытные более мобильны в выборе корма и поедают недоступные черепахам растения. Во-вто- рых, на большей части ареала плотность населения черепахи не превышает 5 ос./га (Божанский, Фролов, 2001; Бондаренко и др., 2001; Бондаренко, 2007; Bondarenko, Peregontsev, 2003; 2006). При таких показателях обилия ее сомнительно рассматривать как конкурента. В третьих, в немногочисленных локальных местообитаниях с высокой плотностью черепахи, превышающей 20—40 ос./га (Кубыкин, 1985; Бондаренко и др., 2001; Бондаренко, Перегонцев, 2006), где они могли бы составить конкуренцию диким копытным (джейрану, сайгаку, кулану), последние истреблены или их численность ничтожно мала.

Отмечалось, что A. horsfieldii наносят существенный вред пастбищам и могут серьезно конкурировать с домашним скотом, так как растения одинаково хорошо поедаются теми и другими (Захидов, 1938; Богданов, 1960; Чернов, 1959; Мамбетжумаев, 1972; Шаммаков, 1981). Нами отмечено, что в предгорьях хребта Нуратау (Узбекистан) овцы и козы поедали злаки, малопривлекательные для черепах, а мелкие эфемеры (Leptaleum, Нуресоит), доминирующие в питании черепахи, часто пропускали. Кроме того, черепахам были доступны растения, которые не выедались скотом до основания, и те, что сохранялись под кронами кустарничков, так как были недоступны для него. Черепахи доставали их, просовывая голову между жестких стеблей. Таким образом, различная тактика добывания корма позволяет животным снизить конкуренцию при совместном использовании ресурсов.

Имеется предположение, что потребление черепахой ядовитых для копытных растений способно ослабить конкуренцию (Параскив, 1956, Lagarde et al., 2003). Однако во многих местообитаниях токсичным растениям в питании A. horsfieldii не принадлежит доминирующая роль (Bondarenko et al., 2011). Отметим, что Koelpini° linearis, потенциально токсичная для травоядных млекопитающих (Koul et al., 2000), и Papaver pavoninum, содержащий алкалоиды, в некоторых источниках отнесены к категории удовлетворительно поедаемых скотом видов (Гаевская и др., 1958).

Следует учитывать снижение нагрузки на пастбища за счет весенней вегетации и прироста фитомассы, питания малосъедобными для скота растениями, а также из-за отсутствия черепах на поверхности большую часть года (-9.5 мес). Следовательно, несмотря на то, что A. horsfieldii способна конкурировать с домашними копытными, считать ее серьезным вредителем пастбищного животноводства нельзя. Отсутствие выверенного среднего показателя суточного потребления корма затрудняет точный расчет количества фитомассы, изымаемой популяцией за сутки, и правильную оценку ее воздействия на сообщество пастбищ. Более корректную оценку воздействия на пастбища травоядных млекопитающих и среднеазиатской черепахи может дать измерение в сухом виде потребляемой растительной массы и ее запасов в местообитании, которое применяется при изучении питания травоядных млекопитающих (Абатуров, 1980).

О вреде черепахи растениеводству. Отмечалось, что в сельскохозяйственных районах A. horsfieldii наносила серьезный вред посевам зерновых, люцерны, бахчевых культур, хлопчатника, гороха (Захидов, 1938,1971; Поляков, 1946; Параскив, 1956; Рустамов, 1956; Чернов, 1959; Богданов, 1960, 1965, 1978; Шаммаков, 1981; Атаев 1985). Большинство фактов, изложенных в литературе, касается периода масштабного освоения целины.

В результате уничтожения естественных местообитаний черепахи расселялись на полях. В связи с этим население проводило их массовый сбор и уничтожение (Захидов, 1938; Богданов, 1960, 1978). К концу 20 в. с большей части освоенных территорий черепахи были вытеснены, а пригодные для обитания участки внутри орошаемых земель локализованы или ликвидированы (Бондаренко, 1994; Бондаренко, Перегонцев, 2006, Bondarenko, Peregontsev, 2006). К настоящему вре мени в какой-то мере сохраняется проблема по травы посевов богарных зерновых на подгорных равнинах и в предгорьях, так как богарные поля не изолированы каналами и коллекторами от природных выделов, что позволяет черепахам заходить на их окраины и объедать всходы. Заходы черепах на на богарные поля неоднократно наблюдались нами в Кашкадарьинской обл. (Узбекитан) и Северном Хорасане (Иран). Однако в большинстве районов богарного земледелия наблюдается невысокая плотнотность населения черепах и такого ущерба посевам, как раньше, они уже не приносят (Бондаренко, Перегонцев, 2006).

ЗАКЛЮЧЕНИЕ

Кормовые ресурсы и питание A.horsfieldii наиболее полно изучены в центральной части ареала вида - в Узбекистане. На периферии ареала, особенно в южной его части, охватывающей Кыргызстан, Иран, Афганистан и Пакистан, этот вопрос почти не изучался. Общий список растений потребляемых черепахой, включает 167 видов относящихся к 42 семействам. Однако в число наиболее предпочитаемых видов растений входит менее 50% от общего их числа. Эти виды представлены в основном несколькими семействами: Asteraceae Brassicaceae, Liliaceae, Papaveraceae, Fabaceae, Poaceae.

Распространение черепахи по территории тесно связано с распространением пустынных эфемеров и эфемероидов. Современный ареал A.horsfieldii располагается в пределах области распространения светлых сероземов, лессов и супесей с развитым эфемеровым покровом (Bondarenko, Peregontsev, 2009). Везде по ареалу черепаха использует в пищу близкородственные виды растений, большинство из которых относятся к роду Astragalus, Eremopyrum, Strigosella, Scorzonera, Leptaleum, Trigonella, Tulipa, Heterocaryum, Papaver, Hypecoum, Poa, Taraxacum.

Устойчивое существование популяций A. horsfieldii обеспечивается базовыми кормовыми объектами, представляющими стратегический ресурс. Базовые объекты питания представлены высоко питательными видами растений, которые позволяют черепахе аккумулировать за короткий весенний период необходимую энергию для сезонной активности (поиск партнеров, оплодотворение, откладка яиц) и пережить продолжительную спячку. Оказалось, что в местообитаниях с высоким обилием предпочитаемых видов растений поддерживается высокая плотность популяций A. horsfieldii. В выборе корма среднеазиатская черепаха проявляет выраженную избирательность, и отнесена нами ближе к специализированным потребителям, чем к универсальным. При этом в ее диете преобладали виды растений не только с высоким индексом избирательности, но и высоким обилием в сообществе.

Представление о пищевой конкуренции A. horsfieldii с дикими копытными, основанное на гипотетических предположениях, не состоятельно. Конкуренция с домашними копытными возможна лишь в местах с высокой плотностью населения черепахи. Несколько таких участков имеется в Узбекистане, но на большинстве их с конца 90-х г. ведется промысел черепах, снижающий конкуренцию. На большей части ареала, где плотность населения A. horsfieldii не превышает 5 ос./га, острых конкурентных отношений не возникает. Причина потребление черепахой токсичных растений окончательно не выяснена. Есть два предположения: токсичные растения потребляются для очищения организма от гельминтов и потребление этих растений вызвано высоким содержания в них влаги и возможно более высоким, чем у млекопитающих, порогом токсичности к этим растениям. Вероятно, оба эти предположения справедливы и дополняют друг друга.

Вредоносное воздействие черепахи на скотоводческие пастбища ранее преувеличивалось. Вред для растениеводства последнее время снизился из-за практически полного ее вытеснения с орошаемых территорий, а также снижения численности в районах богарного земледелия. До настоящего времени все еще слабо изучены аспекты питания, которые касаются физиологии питания и особенно эффективности усвоения пиши (перевариваемости). Необходимо уточнить среднюю массу пищи, потребляемую за день, а также выяснить динамику изъятия растительной массы и из сообщества за определенное время с учетом условий среды, чтобы правильно оценить влияние популяции на фитоценоз и нагрузку на пастбища.


Бондаренко Д.А., Перегонцев Е.А.

Зоологический журнал том 91, номер 11, 2012 год © 2012 г. 

⇓ Скачать PDF "Зоологический журнал" сборник со статьями про черепах (28 мб)